Corrigé bac SVT 2025 Métropole jour 2 — Exercice 2 : Robe très claire d'un poulain : crossing-over chez la jument ou syndrome du poulain blanc
Sujet officiel du baccalauréat, spécialité sciences de la vie et de la Terre, session 2025. Corrigé rédigé par Ibrahim Alame.
Travailler ce sujet sur Adloun Sujet officiel (PDF) Corrigé complet (PDF)
Énoncé
Il arrive que des poulains naissent avec un pelage très clair. Dans certains cas, ce caractère peut se révéler préoccupant et nécessiter une surveillance car il peut être associé au syndrome du poulain blanc, qui est une maladie génétique causant de très graves troubles de la digestion. On s'intéresse au cas d'un poulain au pelage très clair.
Photographie du poulain étudié. (Photographie en noir et blanc : un poulain nouveau-né couché sur la paille, au pied de sa mère dont on ne voit que les membres ; son pelage est uniformément très clair, presque blanc — document reproduit dans le sujet PDF.) Source : d'après equidia.fr
QUESTION :
Expliquer les deux origines possibles de la couleur très claire de ce poulain, dont l'une serait liée à une maladie génétique.
Vous organiserez votre réponse selon une démarche de votre choix intégrant des données des documents et les connaissances utiles.
Document 1 : robes des parents du poulain et caractéristiques génétiques
Chez les chevaux, de nombreux gènes sont impliqués dans la coloration de l'animal appelée robe, qui est à la base noire ou fauve (c'est-à-dire rousse). Cette robe de base est sous le contrôle du gène extension. D'autres gènes, comme le gène kit, peuvent intervenir en modulant la couleur de base par la présence de poils blancs ou par un mélange de poils de différentes teintes.
**Document 1a : photographie de l'étalon, père du poulain, et allèles des gènes extension et kit.** (Photographie d'un cheval à la robe fauve claire et à la crinière blonde, légendée « Poils fauves homogènes ». À côté, le schéma de la paire de chromosomes n<sup>o</sup> 3 : les deux chromosomes homologues portent, au locus du gène extension, l'allèle et, au locus du gène kit, l'allèle — document reproduit dans le sujet PDF.)
**Document 1b : photographie de la jument, mère du poulain, et allèles des gènes extension et kit.** (Photographie d'une jument légendée « Poils noirs et blancs mélangés » : tête et membres sombres, corps grisonnant. Schéma de la paire de chromosomes n<sup>o</sup> 3 : le premier chromosome porte l'allèle du gène extension et l'allèle du gène kit ; le second porte l'allèle et l'allèle — document reproduit dans le sujet PDF.)
Source : d'après wikipedia.org et ehorses.fr
**Document 1c : allèles des gènes extension et *kit***
| Gène | Allèle | Phénotype associé | Caractéristique de l'allèle |
|---|---|---|---|
| extension | Poils fauves | Récessif | |
| Poils noirs | Dominant | ||
| kit | Pas d'effet sur la robe de base | Récessif | |
| Poils blancs mélangés à la robe de base ; robe très claire chez les chevaux aux poils fauves | Dominant |
Source : d'après Déterminisme génétique des robes du cheval et maladies associées, J. Rey – école vétérinaire d'Alfort – 2019
Document 2 : micrographie de chromosomes d'une cellule reproductrice en début de division cellulaire, lors de la formation des gamètes
(Micrographie en noir et blanc : une dizaine de structures sombres dispersées, chacune formée de deux filaments épais accolés et enroulés l'un autour de l'autre, avec des points de croisement visibles ; l'une d'elles, encadrée, est légendée « Appariement de deux chromosomes homologues ». Barre d'échelle : — document reproduit dans le sujet PDF.)
Les appariements chromosomiques peuvent conduire à des recombinaisons génétiques.
Source : d'après G. H. Jones et al. Cell 126, 2006
**Document 3 : allèles du gène ednrb des parents du poulain de robe très claire**
Un autre gène a la particularité d'intervenir lors du développement de l'embryon des Vertébrés : le gène ednrb, qui est responsable du syndrome du poulain blanc. Les individus possédant deux allèles mutés de ce gène présentent une anomalie de la formation de l'intestin, qui se traduit après la naissance par de graves troubles de la digestion.
Les ADN des parents du poulain et de chevaux témoins ont été amplifiés en laboratoire (par PCR) de manière à produire de nombreux fragments dont la taille dépend de la nature de leurs allèles pour le gène ednrb. La longueur de ces fragments en paires de bases (exprimée en kb) a été déterminée par électrophorèse, technique permettant de séparer des molécules chargées dans un gel sous l'effet d'un champ électrique.
Photographie d'une partie du gel d'électrophorèse présentant le résultat de l'expérience. (Cinq pistes numérotées de 1 à 5, le sens de migration de l'ADN amplifié allant du haut vers le bas. Piste 1 : échelle de marqueurs de taille. Deux niveaux de bandes sont repérés par des flèches : « Fragment de 115 kb », le plus haut, et « Fragment de 90 kb », le plus bas — document reproduit dans le sujet PDF.) Bandes lues sur la photographie :
| Piste | Fragment de 115 kb | Fragment de 90 kb |
|---|---|---|
| 2 -- homozygote non muté | absent | présent |
| 3 -- jument | présent | présent |
| 4 -- étalon | présent | présent |
| 5 -- homozygote muté, porteur du syndrome | présent | absent |
Légende :<br> 1 : marqueurs de taille de l'ADN servant d'échelle<br> 2 : ADN d'un individu présentant des allèles d'ednrb non mutés (homozygote non muté)<br> 3 : ADN de la jument<br> 4 : ADN de l'étalon<br> 5 : ADN d'un individu présentant des allèles d'ednrb mutés (homozygote muté) et porteur du syndrome du poulain blanc
Source : d'après Le syndrome du poulain blanc : mise au point d'un test de diagnostic moléculaire – F. Seignobos – Ecole vétérinaire de Lyon – 2010
**Document 4 : rôle du gène ednrb dans la coloration du pelage**
Le gène ednrb intervient notamment dans la mise en place des cellules de la peau qui produisent les pigments (mélanines) à l'origine de la couleur fauve ou noire des poils. Ces cellules sont appelées mélanocytes. Au cours de la formation de l'embryon, des cellules souches ou précurseurs des mélanocytes se déplacent de zones internes vers la surface de l'embryon, lors d'un processus de migration, grâce à différents gènes dont le gène ednrb. Ces cellules souches vont alors se différencier et assurer leur fonction de cellules pigmentées dans la peau. La migration de telles cellules a été étudiée chez des embryons de souris. Elle est semblable chez les embryons de cheval.
Résultats d'une expérience de localisation de précurseurs de mélanocytes en migration chez des embryons de souris de génotypes différents et phénotypes après la naissance. (Tableau de photographies à deux lignes et deux colonnes — document reproduit dans le sujet PDF. Colonne 1 : photographie de la tête d'un embryon de 12 jours, représentative du reste de l'embryon ; les précurseurs des mélanocytes sont repérables par les flèches noires, O : œil en formation ; barre d'échelle . Colonne 2 : photographie de l'individu après la naissance.)
- **Souris hétérozygote pour *ednrb*** : sur la tête de l'embryon, des points noirs très nombreux — de l'ordre de la centaine (comptés sur l'image) — répartis de part et d'autre de l'œil en formation : une traînée au-dessus et à gauche de l'œil, une nappe plus dense à droite, qui descend jusqu'au bord inférieur du cliché ; deux d'entre eux sont désignés par des flèches. Après la naissance, souris au pelage noir sur tout le corps, seules les extrémités des pattes étant blanches.
- **Souris homozygote mutée pour *ednrb*** : sur la tête de l'embryon, cinq points noirs seulement (comptés sur l'image), groupés en haut et à gauche du cliché, à distance de l'œil, l'un d'eux désigné par une flèche ; aucun point sur le pourtour de l'œil ni dans la moitié inférieure de l'image. Après la naissance, souris au pelage blanc, à l'exception de deux taches noires sur le haut de la tête et la nuque et d'une tache sombre à la base de la queue.
Sources : d'après H. Lee et al. Developmental Biology 259 (2003) et B. Chen et al. Experimental Animals 65 (2016).
Corrigé
Introduction
Le poulain étudié est né avec un pelage très clair. Ce phénotype peut être bénin — une simple combinaison d'allèles des gènes de la robe — ou traduire une maladie génétique grave, le syndrome du poulain blanc, dû au gène du développement embryonnaire ednrb. Quelles combinaisons d'allèles, reçues de ses parents, peuvent rendre ce poulain très clair, et comment chacune s'explique-t-elle par la méiose, le brassage génétique et la fécondation ? Les documents 1 et 2 établiront la première origine, liée aux gènes extension et kit ; les documents 3 et 4, la seconde, liée à l'homozygotie pour un allèle muté d'ednrb. Leur mise en relation fournira le moyen de les départager.
Document 1 — Génotypes des parents et combinaison qui rend une robe très claire
Ce que je vois. Le tableau 1c donne les relations de dominance : (poils noirs) domine (poils fauves) ; (poils blancs mélangés à la robe de base) domine (sans effet). Surtout, l'allèle donne une « robe très claire chez les chevaux aux poils fauves ». Les schémas 1a et 1b montrent que les deux gènes sont portés par la même paire de chromosomes, la paire n<sup>o</sup> 3 : ce sont des gènes liés. L'étalon, aux poils fauves homogènes, porte et sur ses deux chromosomes n<sup>o</sup> 3 : son génotype est , homozygote récessif pour les deux gènes. La jument, aux poils noirs et blancs mélangés, porte et sur un chromosome, et sur l'autre : son génotype est , double hétérozygote.
Ce que j'en déduis. Les phénotypes des parents confirment ces dominances : l'étalon, homozygote , est fauve ; la jument exprime ses allèles dominants et . Pour que le poulain ait une robe très claire au sens du document 1c, il doit avoir des poils fauves, donc être homozygote , et posséder au moins un allèle : son génotype serait . Le père, homozygote, ne peut lui transmettre qu'un chromosome . La mère doit donc lui avoir transmis un chromosome portant à la fois et . Or aucun de ses deux chromosomes n<sup>o</sup> 3 ne porte cette association : chez elle, est associé à , et à . Un chromosome n'a pu naître que d'une recombinaison entre les deux chromosomes homologues de la jument, lors de la formation de ses ovules. C'est ce que le document 2 permet d'expliquer.
Document 2 — Le crossing-over de la prophase I crée le chromosome recombiné
Ce que je vois. La micrographie montre une cellule en début de méiose (« lors de la formation des gamètes ») : les chromosomes, condensés, sont associés deux à deux en bivalents, chaque paire apparaissant comme deux filaments enroulés l'un autour de l'autre, avec des points de croisement, les chiasmas ; l'échelle () est celle d'une cellule.
Ce que j'en déduis. Il s'agit de la prophase I de la méiose. Les chromosomes homologues appariés échangent des segments de chromatides au niveau des chiasmas : c'est le crossing-over, à l'origine du brassage intrachromosomique. Chez la jument, un crossing-over entre les locus d'extension et de kit échange les extrémités des deux chromatides concernées : à côté des chromatides parentales et , il forme deux chromatides recombinées, et . Au fil de ses méioses, la jument produit donc quatre types d'ovules : deux types parentaux, et , majoritaires, et deux types recombinés, et , minoritaires — d'autant plus rares que les deux gènes sont proches sur le chromosome. La fécondation d'un ovule recombiné par un spermatozoïde de l'étalon donne une cellule-œuf . L'échiquier de croisement le résume (les spermatozoïdes sont tous ) :
| Ovule maternel | Génotype du poulain | Robe attendue |
|---|---|---|
| , parental | poils noirs et blancs mélangés (comme la mère) | |
| , parental | fauve homogène (comme le père) | |
| , recombiné | noire | |
| , recombiné | fauve très claire |
Conclusion partielle. Première origine possible : le poulain est fauve et porteur de , reçu par un ovule recombiné issu d'un crossing-over chez sa mère. Ses mélanocytes fonctionnent (poils fauves), mais l'allèle y mêle des poils blancs, d'où une robe très claire : un simple caractère de robe, sans maladie.
Document 3 — Les deux parents sont hétérozygotes pour le gène ednrb
Ce que je vois. Sur le gel, les fragments d'ADN amplifiés par PCR ont migré vers le bas ; les plus courts migrent le plus loin, et de fait la bande de 90 kb est plus basse que celle de 115 kb. Le témoin homozygote non muté (piste 2) ne présente qu'une bande, à 90 kb ; le témoin homozygote muté, atteint du syndrome (piste 5), qu'une bande à 115 kb. La jument (piste 3) et l'étalon (piste 4) présentent chacun deux bandes, à 115 kb et à 90 kb.
Ce que j'en déduis. L'allèle non muté du gène ednrb, que je note , donne un fragment de 90 kb ; l'allèle muté, noté , donne un fragment de 115 kb (la mutation modifie la longueur du fragment amplifié ; le sujet écrit « kb » là où son texte annonce des paires de bases, mais seul l'écart de taille compte ici). Un individu ayant deux bandes possède les deux allèles : les deux parents du poulain sont hétérozygotes . Ils ne sont pas malades alors qu'ils portent : l'allèle muté est récessif, ce qui est cohérent avec le texte (seuls « les individus possédant deux allèles mutés » sont atteints) ; les parents sont des porteurs sains. L'étalon, mâle, porte lui aussi deux bandes : il possède deux exemplaires du gène, qui n'est donc pas situé sur le chromosome X — ednrb est autosomique. Chacun produit, par méiose, autant de gamètes que de gamètes . L'échiquier du croisement donne de , de et de : chaque poulain issu de ce couple a une chance sur quatre d'être homozygote muté, c'est-à-dire d'être atteint du syndrome du poulain blanc, avec une anomalie de formation de l'intestin.
Conclusion partielle. Le syndrome du poulain blanc est une maladie génétique autosomique récessive ; le poulain, né de deux porteurs sains, est possiblement . Reste à comprendre pourquoi un tel génotype rend le pelage blanc : c'est l'objet du document 4.
Document 4 — Sans ednrb fonctionnel, les précurseurs des mélanocytes ne migrent pas
Ce que je vois. Chez l'embryon de souris hétérozygote (un allèle muté, un allèle normal), à 12 jours, les précurseurs des mélanocytes sont très nombreux — de l'ordre de la centaine de points noirs comptés sur l'image — et répartis de part et d'autre de l'œil en formation, jusqu'au bord du cliché ; la souris née de cet embryon a un pelage noir sur tout le corps. Chez l'embryon homozygote muté, au même stade et au même grossissement (la barre de est identique sur les deux clichés), on n'en compte que cinq — une vingtaine de fois moins —, groupés en haut de l'image, aucun n'ayant atteint le pourtour de l'œil ; la souris correspondante est blanche, à deux ou trois taches sombres près.
Ce que j'en déduis. Le gène ednrb est nécessaire à la migration des précurseurs des mélanocytes depuis les zones internes de l'embryon jusqu'à la peau. Un seul allèle fonctionnel suffit : l'hétérozygote a une migration normale, ce qui confirme la récessivité de . Chez l'homozygote muté, presque aucun précurseur n'atteint la peau ; celle-ci se retrouve dépourvue de mélanocytes, donc de mélanines, et les poils poussent blancs, quelle que soit la robe « programmée » par les gènes extension et kit : ces gènes agissent dans les mélanocytes, et il n'y en a plus. Les rares taches sombres correspondent aux quelques précurseurs qui ont abouti. Le document indique que la migration est semblable chez le cheval : un poulain naît donc blanc. Le document 3 ajoute que ce même génotype entraîne une anomalie de l'intestin : ce gène du développement commande la migration de cellules embryonnaires vers plusieurs organes — la peau, mais aussi la paroi de l'intestin —, d'où les graves troubles digestifs.
Conclusion partielle. Seconde origine possible : le poulain est homozygote pour ednrb ; l'absence de migration des précurseurs des mélanocytes laisse sa peau sans pigment (pelage blanc), et l'intestin mal formé fait de lui un poulain atteint du syndrome du poulain blanc.
Mise en relation
Les documents conduisent à deux explications, que le tableau résume.
| Origine 1 : robe fauve très claire | Origine 2 : syndrome du poulain blanc | |
|---|---|---|
| Gènes en cause | extension et kit, liés (paire no 3) | ednrb |
| Génotype du poulain | ||
| Transmission | crossing-over chez la jument (brassage intrachromosomique) ovule recombiné , fécondé par un spermatozoïde | chaque parent hétérozygote transmet ; probabilité |
| Mécanisme cellulaire | mélanocytes présents : poils fauves mêlés de poils blancs () | pas de migration des précurseurs : peau sans mélanocytes, poils blancs ; intestin anormal |
| Santé | poulain sain | troubles digestifs très graves |
Les deux origines ne s'excluent pas : un poulain est blanc quels que soient ses allèles d'extension et de kit. Ce qui les distingue, c'est l'échelle du mécanisme : dans le premier cas les mélanocytes sont là, et ce sont les allèles de la robe qui règlent la couleur des poils ; dans le second, l'embryon n'a pas mis en place les cellules pigmentaires. Pour trancher, il suffit de faire au poulain le test du document 3 : amplifier son gène ednrb par PCR et lire le gel. Une seule bande à 115 kb signe le génotype et le syndrome ; deux bandes, ou une seule à 90 kb, écartent la maladie — la robe claire relève alors de la première origine, ce que confirmerait l'observation de poils fauves mêlés de poils blancs. La surveillance évoquée par le sujet, dans l'attente des premiers signes digestifs, s'explique ainsi.
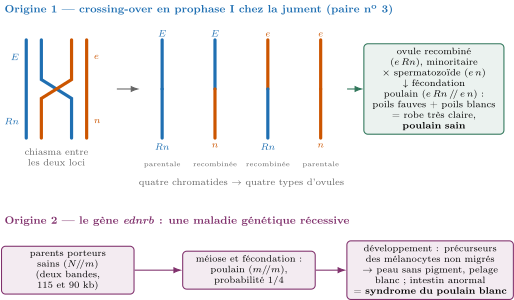
Ce que le correcteur attend : ne pas conclure du seul pelage que le poulain est malade (le document 3 donne une probabilité, , pas une certitude) ; voir que la combinaison n'existe sur aucun chromosome de la mère et exige donc un crossing-over ; ne pas confondre les deux échelles (allèles de la couleur contre absence des cellules qui la fabriquent).
Conclusion
La couleur très claire du poulain a deux origines possibles. La première est un simple caractère de robe : fauve comme son père, il a reçu de sa mère, par un ovule recombiné né d'un crossing-over entre les gènes liés extension et kit, l'allèle dominant qui mêle des poils blancs aux poils fauves. La seconde est une maladie génétique récessive : né de deux parents porteurs sains , il a, comme tout poulain de ce couple, une chance sur quatre d'être homozygote pour ednrb ; ses précurseurs de mélanocytes n'ont alors pas migré vers la peau, son pelage est blanc et son intestin mal formé — c'est le syndrome du poulain blanc. Un test par PCR et électrophorèse permet de les départager. Brassage génétique, transmission d'allèles récessifs et expression des gènes au cours du développement produisent ainsi la diversité des phénotypes ; le diagnostic moléculaire permet aujourd'hui d'éviter, par le choix des reproducteurs, de croiser deux porteurs sains.