Mutations, variabilité génétique et histoire humaine du génome
Cours complet · SVT (première), chapitre 3 · première, spécialité sciences de la vie et de la Terre
Travailler ce chapitre sur Adloun
L'ADN de chaque cellule porte, dans l'ordre de ses nucléotides, l'information héréditaire. Cette molécule est remarquablement stable : elle est fidèlement copiée à chaque réplication et transmise de génération en génération. Pourtant, aucune copie n'est parfaite. De rares modifications de la séquence, les mutations, apparaissent au fil des divisions cellulaires ou sous l'effet d'agents extérieurs. Loin d'être de simples accidents, ces mutations sont la source première de la diversité des allèles : sans elles, tous les individus d'une espèce seraient génétiquement identiques et l'évolution serait impossible.
Ce chapitre étudie d'abord la nature moléculaire des mutations et leurs conséquences sur la protéine et le phénotype, puis leurs origines (spontanées ou induites) et leur réparation. Nous distinguerons ensuite les mutations somatiques des mutations germinales, avant de montrer comment la mutation, en créant sans cesse de nouveaux allèles, alimente la biodiversité. Enfin, nous verrons que la comparaison des génomes actuels et anciens permet de reconstituer une part de l'histoire humaine : migrations, métissages et parentés avec les autres formes d'Homo.
3.1 Les mutations : des modifications de la séquence de l'ADN
3.1.1 Définition et types de mutations
Une mutation est un changement de la séquence des nucléotides de l'ADN. Ce changement est héréditaire au niveau cellulaire : une fois installé, il est copié lors des réplications suivantes et transmis aux cellules filles.
Une mutation est une modification, rare et aléatoire, de la séquence de nucléotides de l'ADN. Elle constitue la seule source de nouveaux allèles et donc de variabilité génétique.
On distingue trois grands types de mutations ponctuelles selon la nature du changement affectant la séquence :
- la substitution : un nucléotide est remplacé par un autre. La longueur de la séquence ne change pas ;
- l'insertion : un ou plusieurs nucléotides sont ajoutés dans la séquence, qui s'allonge ;
- la délétion : un ou plusieurs nucléotides sont supprimés, la séquence se raccourcit.
Le schéma ci-dessous illustre ces trois cas à partir d'une même séquence de référence.
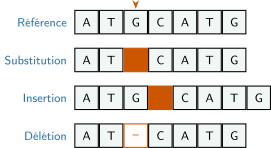
{Trois types de mutations appliqués à la séquence de référence ATGCATG : substitution du G en T, insertion d'un C, délétion d'un G. Les cases orangées marquent le nucléotide modifié.}
3.1.2 Conséquences sur la protéine
La conséquence d'une mutation dépend de sa position et de son effet sur la séquence des acides aminés de la protéine codée. Rappelons que le code génétique est lu par triplets (codons) et qu'il est redondant (plusieurs codons codent le même acide aminé).
Une substitution peut avoir trois effets :
- mutation silencieuse (neutre) : le nouveau codon code le même acide aminé ; la protéine est inchangée ;
- mutation faux-sens : le nouveau codon code un acide aminé différent ; la protéine est modifiée ;
- mutation non-sens : le nouveau codon devient un codon stop ; la traduction s'arrête prématurément et la protéine est tronquée, souvent non fonctionnelle.
Les insertions et délétions ont une conséquence particulière. Si le nombre de nucléotides ajoutés ou supprimés n'est pas un multiple de trois, tout le cadre de lecture est décalé à partir du point de mutation : tous les codons situés en aval sont modifiés. On parle de mutation décalante (ou frameshift). La protéine obtenue est en général complètement différente et non fonctionnelle.
| Type de mutation | Effet sur la séquence | Effet possible sur la protéine |
|---|---|---|
| Substitution silencieuse | 1 nucléotide changé | aucune (même acide aminé) |
| Substitution faux-sens | 1 nucléotide changé | 1 acide aminé différent |
| Substitution non-sens | 1 nucléotide changé | protéine tronquée (codon stop) |
| Insertion / délétion | cadre de lecture décalé | protéine très souvent non fonctionnelle |
Enfin, une même mutation peut être sans effet sur le phénotype (mutation neutre), avantageuse (elle améliore l'adaptation) ou défavorable (elle est à l'origine d'une maladie génétique). C'est seulement dans un environnement donné que l'on peut juger de l'effet d'un allèle.
3.2 L'origine des mutations et leur réparation
3.2.1 Mutations spontanées et mutations induites
Les mutations ont deux origines principales.
- Les mutations spontanées résultent d'erreurs de la réplication de l'ADN. L'ADN polymérase se trompe très rarement, mais comme le génome humain compte environ 3 milliards de paires de bases, quelques erreurs subsistent à chaque division. Ces mutations sont rares et aléatoires.
- Les mutations induites sont provoquées par des agents extérieurs appelés agents mutagènes, qui augmentent fortement la fréquence des mutations.
Un agent mutagène est un facteur de l'environnement capable d'endommager l'ADN et d'augmenter la fréquence des mutations. On distingue :
- les agents physiques : rayonnements ultraviolets (UV) du Soleil, rayonnements ionisants (rayons X, radioactivité) ;
- les agents chimiques : substances de la fumée de tabac, benzène, certains pesticides, etc.
Le taux de mutations croît généralement avec la dose de mutagène reçue, comme le montre la relation ci-dessous entre l'intensité d'une exposition aux UV et la fréquence de mutations mesurée dans des cellules de peau.
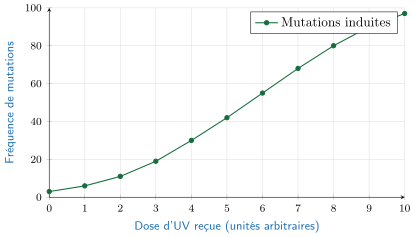
{La fréquence des mutations augmente avec la dose d'UV reçue : plus l'exposition est forte, plus le nombre de lésions de l'ADN est élevé.}
3.2.2 La réparation de l'ADN
Les cellules ne subissent pas passivement les dommages de leur ADN. Elles disposent de systèmes enzymatiques de réparation qui détectent et corrigent la plupart des lésions avant la division.
Des enzymes de réparation surveillent en permanence l'ADN : elles repèrent les nucléotides anormaux ou mal appariés, les excisent et les remplacent par les bons nucléotides en s'appuyant sur le brin complémentaire. Cette réparation réduit fortement le nombre de mutations, mais elle n'est pas totale : les mutations résiduelles qui échappent à la correction deviennent définitives et sont transmises aux cellules filles.
Lorsque l'exposition à un mutagène est intense ou prolongée, les systèmes de réparation sont débordés et le nombre de mutations résiduelles augmente. Certaines maladies héréditaires, comme le xeroderma pigmentosum, se caractérisent d'ailleurs par une déficience des enzymes de réparation : les personnes atteintes développent de très nombreux cancers de la peau dès la moindre exposition au Soleil.
Des études épidémiologiques comparent, dans différentes régions du monde, la durée d'exposition solaire moyenne et le nombre de cancers de la peau (mélanomes) déclarés. On observe que la fréquence de ces cancers est d'autant plus élevée que l'ensoleillement (et donc la dose d'UV) est fort, et qu'elle est plus grande chez les personnes à peau claire, moins protégées par la mélanine.
Interprétation. Les UV sont un agent mutagène : ils provoquent des lésions de l'ADN des cellules de la peau. Lorsque ces mutations touchent des gènes contrôlant la division cellulaire et échappent à la réparation, elles peuvent conduire à une prolifération incontrôlée, c'est-à-dire à un cancer. La corrélation dose d'UV / fréquence de cancers illustre le lien entre exposition à un mutagène et apparition de mutations.
3.3 Mutations somatiques et mutations germinales
Toutes les mutations n'ont pas la même portée pour la descendance. Tout dépend du type de cellule dans laquelle elles surviennent.
Les cellules somatiques forment l'ensemble du corps (peau, foie, muscles…). Les cellules germinales sont les cellules de la lignée qui produit les gamètes (ovules et spermatozoïdes).
- Une mutation somatique n'est pas transmise à la descendance de l'individu. Elle est en revanche transmise à toutes les cellules filles issues de la cellule mutée par mitoses successives : il se forme un clone de cellules mutées, à l'origine, par exemple, de cancers.
- Une mutation germinale peut être transmise à la descendance par l'intermédiaire des gamètes. Elle est alors présente dans toutes les cellules de l'enfant et devient une source de variabilité héréditaire, parfois responsable de maladies génétiques transmissibles.
| Mutation somatique | Mutation germinale | |
|---|---|---|
| Cellule concernée | cellule du corps | cellule de la lignée germinale |
| Transmise aux cellules filles | oui (clone) | oui |
| Transmise à la descendance | non | oui |
| Conséquence possible | cancer, tache | maladie héréditaire, nouvel allèle |
Ainsi, seules les mutations germinales participent à l'évolution des espèces, puisqu'elles seules se transmettent au fil des générations.
3.4 La mutation, source de variabilité et de biodiversité
3.4.1 De nouveaux allèles
Un gène peut exister sous plusieurs versions, appelées allèles, qui diffèrent par leur séquence de nucléotides. Or c'est précisément la mutation qui, en modifiant la séquence d'un gène, crée de nouveaux allèles.
Propriété : La mutation crée la diversité allélique
Chaque nouvel allèle est apparu, à un moment de l'histoire de l'espèce, par une mutation d'un allèle préexistant. La diversité des allèles d'une population — sa variabilité génétique — est donc entièrement issue de l'accumulation des mutations au cours du temps.
3.4.2 La matière première de l'évolution
Les mutations sont aléatoires : elles ne surviennent pas parce qu'elles seraient utiles à l'organisme. Un nouvel allèle peut être neutre, défavorable ou, plus rarement, avantageux dans un environnement donné. Les allèles avantageux tendent à se répandre dans les populations au fil des générations : la mutation fournit ainsi la matière première sur laquelle agissent les mécanismes de l'évolution. La diversité génétique qu'elle engendre est aussi une composante essentielle de la biodiversité.
3.5 L'histoire humaine lue dans le génome
3.5.1 Comparer les génomes pour reconstituer des parentés
Le séquençage de l'ADN permet aujourd'hui de comparer les génomes de différents individus, de différentes populations et même d'espèces éteintes. Le principe est simple : plus deux génomes partagent de mutations communes, plus les individus (ou les populations) qui les portent sont apparentés, car ces mutations proviennent d'un ancêtre commun.
Les mutations germinales accumulées au fil des générations s'inscrivent durablement dans le génome. En comparant les allèles présents dans différentes populations, on peut :
- établir des arbres de parenté entre populations et espèces ;
- retracer les grandes migrations des populations humaines ;
- mettre en évidence des métissages entre groupes autrefois séparés.
3.5.2 Néandertal, Denisova et l'Homme moderne
Le séquençage d'ADN fossile a permis de comparer le génome de l'Homme moderne (Homo sapiens) à ceux de deux formes humaines disparues : l'Homme de Néandertal et l'Homme de Denisova. Ces travaux montrent que ces espèces, bien que distinctes, se sont croisées : les populations humaines actuelles non africaines portent encore aujourd'hui un faible pourcentage (de l'ordre de à ) d'allèles hérités de Néandertal, trace génétique de métissages anciens. Le génome humain conserve ainsi la mémoire de l'histoire de notre espèce.
On compare, pour un même fragment de gène, la séquence d'ADN de quatre individus appartenant à des populations différentes. On repère les positions où les nucléotides diffèrent (les mutations).
| Position | ||||||||
|---|---|---|---|---|---|---|---|---|
| Individu | 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 |
| A (référence) | A | T | G | C | A | T | G | C |
| B | A | T | A | C | A | T | G | C |
| C | A | T | A | C | A | C | G | C |
| D | A | T | G | C | A | T | G | C |
Lecture. L'individu D possède la même séquence que la référence A : aucune mutation ne les sépare. Les individus B et C partagent tous deux la substitution en position 3 (G A) : ils descendent d'un ancêtre commun ayant subi cette mutation. C présente en plus une substitution propre en position 6 (T C), apparue plus récemment dans sa lignée. On en déduit un arbre de parenté : B et C forment un groupe, plus proche entre eux que de A ou D.
Méthode : Comparer des séquences pour repérer une mutation
Pour identifier une mutation et son type à partir de deux séquences d'ADN :
- Aligner les deux séquences l'une sous l'autre, nucléotide par nucléotide, en partant du même point de départ.
- Comparer position par position et repérer les nucléotides qui diffèrent.
- Identifier le type :
- même longueur, un nucléotide changé substitution ;
- séquence plus longue insertion ;
- séquence plus courte délétion.
- Traduire éventuellement chaque séquence en acides aminés (lecture par triplets) pour préciser la conséquence : silencieuse, faux-sens, non-sens ou décalage du cadre de lecture.
- Conclure : plus deux séquences partagent de mutations communes, plus les individus sont apparentés.
3.6 Bilan
Les mutations sont des modifications rares de la séquence de l'ADN (substitution, insertion, délétion) dont les conséquences vont de l'absence totale d'effet à la perte de fonction d'une protéine. Spontanées lors de la réplication ou induites par des agents mutagènes, elles sont limitées mais non supprimées par les systèmes de réparation. Somatiques, elles peuvent engendrer des cancers ; germinales, elles se transmettent à la descendance et créent de nouveaux allèles. Cette variabilité génétique est à la fois la matière première de l'évolution et une archive : la comparaison des génomes actuels et anciens retrace migrations, métissages et parentés de l'histoire humaine.
Propriété : Synthèse du chapitre
- Une mutation est une modification de la séquence de l'ADN ; les trois types de base sont la substitution, l'insertion et la délétion.
- Ses effets sur la protéine peuvent être silencieux, faux-sens, non-sens ou, pour les insertions/délétions non multiples de 3, un décalage du cadre de lecture.
- Les mutations sont spontanées (erreurs de réplication) ou induites par des agents mutagènes (UV, rayonnements, tabac) ; les enzymes de réparation en corrigent la plupart.
- Une mutation somatique n'est pas transmise à la descendance (mais forme un clone : cancer) ; une mutation germinale l'est.
- La mutation crée de nouveaux allèles : elle est la source de la variabilité génétique, moteur de l'évolution et de la biodiversité.
- La comparaison des génomes (individus, populations, Néandertal, Denisova) exploite les mutations comme marqueurs pour reconstituer migrations, métissages et arbres de parenté.