La biodiversité et son évolution
Cours complet · enseignement scientifique (terminale), chapitre 7 · terminale, enseignement scientifique
Travailler ce chapitre sur Adloun Exercices corrigés de ce chapitre
7.1 Introduction : combien d'espèces, et comment le saurions-nous ?
Posez la question à un biologiste : combien d'espèces vivent sur Terre ? Il répondra qu'environ deux millions ont été décrites et nommées depuis Linné, et que le total réel est probablement plusieurs fois supérieur. Puis, si vous insistez pour avoir un nombre, il vous donnera une estimation en précisant aussitôt son incertitude — parce que la question, en réalité, est très difficile.
Elle l'est pour une raison qui va occuper tout ce chapitre : on ne peut pas tout compter. On ne compte jamais tous les poissons d'un lac, tous les coléoptères d'une forêt, toutes les bactéries d'une poignée de terre. On prélève un échantillon, et l'on en tire une conclusion sur le tout. Ce passage de la partie au tout est un raisonnement, pas une observation, et il a ses règles, ses conditions de validité et ses marges d'erreur. Le maitriser est l'un des principaux objets de ce chapitre.
Mais la biodiversité n'est pas seulement un inventaire : c'est un objet dynamique. Les populations changent de génération en génération, et pas seulement en nombre — leur composition génétique se modifie. Là encore, on ne peut pas tout observer : on construit un modèle. Le modèle de Hardy-Weinberg, que nous étudierons en détail, dit ce qui se passerait dans un monde idéal où rien ne perturberait la transmission des allèles. Il a une particularité qui en fait un objet philosophique autant que scientifique : on sait qu'il est faux, et c'est pour cela qu'il est utile. Ses écarts avec la réalité mesurent les forces évolutives à l'œuvre.
Enfin, la biodiversité n'est pas indépendante de nous. Nos activités modifient les écosystèmes, et ces modifications nous reviennent — par la santé, par l'alimentation, par le climat. Le concept d'« Une seule santé », entré au programme en , énonce précisément cela : la santé humaine, la santé animale et la santé des écosystèmes ne peuvent plus être traitées séparément.
Trois questions, donc, et un fil commun.
- Comment mesure-t-on une biodiversité qu'on ne peut pas compter ? Échantillonnage, capture-marquage-recapture, intervalle de confiance, métagénomique.
- Comment une population évolue-t-elle génétiquement ? Le modèle de Hardy-Weinberg, ce qu'il prédit, et ce que ses démentis nous apprennent.
- Qu'y changeons-nous ? Fragmentation des milieux, effondrement des effectifs, dérive génétique, « Une seule santé », gestion durable.
Vous allez rencontrer trois fois la même difficulté logique. Estimer un effectif à partir d'une recapture, estimer une proportion à partir d'un intervalle de confiance, prédire une fréquence génotypique à partir d'un modèle probabiliste : dans les trois cas, on raisonne du petit vers le grand, du hasard vers la régularité. C'est ce que les mathématiques appellent l'inférence, et c'est le geste intellectuel qui rend la biologie quantitative possible.
Proportions ; fluctuation d'échantillonnage ; intervalle de confiance ; probabilités conditionnelles ; suites et relations de récurrence : ce chapitre convoque presque tout le module de mathématiques suivi en première. Chaque outil sera rappelé au moment où on en a besoin.
7.2 Mesurer la biodiversité
7.2.1 Le vocabulaire, d'abord
La biodiversité est la diversité du vivant, décrite à trois niveaux emboités :
- la diversité génétique, à l'intérieur d'une même espèce (les différents allèles présents dans une population) ;
- la diversité spécifique, c'est-à-dire l'ensemble des espèces d'un milieu ;
- la diversité écosystémique, c'est-à-dire la variété des milieux et des interactions qui s'y jouent.
Les trois sont liées : appauvrir un écosystème réduit le nombre d'espèces, et réduire l'effectif d'une espèce appauvrit sa diversité génétique.
Un taxon est un groupe d'êtres vivants reconnu par la classification : une espèce, un genre, une famille, un ordre. Parler d'un taxon plutôt que d'une espèce permet de travailler au niveau où l'identification est fiable — on sait souvent reconnaitre une famille d'insectes sans savoir nommer l'espèce.
La richesse spécifique d'un milieu est le nombre d'espèces qu'on y trouve. L'abondance d'une population, d'une espèce ou d'un taxon est le nombre d'individus. L'abondance relative d'un taxon est la part qu'il représente dans l'effectif total :
Deux prairies peuvent avoir la même richesse spécifique — disons vingt espèces de plantes chacune — et n'avoir rien à voir. Si dans la première une seule espèce représente des pieds, la communauté est en réalité très déséquilibrée ; si dans la seconde les vingt espèces se partagent l'espace, elle est équilibrée. La richesse compte les noms, l'abondance relative compte les individus. Un inventaire qui ne donne que la richesse cache la moitié de l'information.
7.2.2 Le savoir : une biodiversité largement inconnue
Il existe sur Terre un grand nombre d'espèces. Les scientifiques estiment cependant qu'une part importante de la biodiversité reste à découvrir. La biodiversité se mesure entre autres par les techniques d'échantillonnage qui permettent d'estimer le nombre d'espèces dans différents écosystèmes. Les composantes de la biodiversité peuvent aussi être décrites par l'abondance (nombre d'individus) d'une population, d'une espèce ou d'un plus grand taxon.
Environ deux millions d'espèces ont été décrites. Les estimations du total varient beaucoup selon les méthodes ; l'une des plus citées, publiée en par Camilo Mora et ses collègues, avance environ millions d'espèces eucaryotes, dont millions marines. D'autres travaux, fondés sur les insectes tropicaux, donnent des chiffres différents. Pour les bactéries et les archées, l'incertitude est bien plus grande encore. Retenons l'ordre de grandeur et, surtout, la raison de l'incertitude : les groupes les mieux connus (oiseaux, mammifères, plantes à fleurs) sont ceux qui sont gros, visibles et qui nous intéressent ; les groupes les plus riches (insectes, nématodes, champignons, micro-organismes) sont ceux qu'on inventorie le moins.
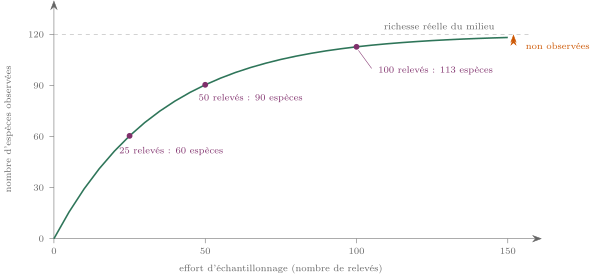
supplémentaire apporte de moins en moins d'espèces nouvelles : doubler l'effort de à relevés ne fait gagner que espèces, contre pour les premiers. La courbe s'aplatit sans jamais atteindre la richesse réelle, et c'est pourquoi un inventaire ne se termine jamais tout à fait.</div>
Méthode : Exploiter des données de terrain pour estimer la biodiversité
Après une sortie de terrain, un relevé d'exploration ancien ou une base de données naturaliste :
- Dresser le tableau des effectifs par taxon. Ne jamais partir des pourcentages : partir des effectifs bruts, et calculer les pourcentages ensuite.
- Calculer la richesse spécifique : c'est le nombre de lignes du tableau, autrement dit le nombre de taxons distincts observés.
- Calculer les abondances relatives : effectif du taxon divisé par l'effectif total. Vérifier que la somme fait bien (ou ).
- Représenter, en classant les taxons par abondance décroissante. Une communauté équilibrée donne un profil régulier ; une communauté dominée par une espèce donne un profil en marche d'escalier.
- Discuter l'effort d'échantillonnage. Combien de relevés, sur quelle surface, à quelle saison, avec quelle méthode ? Deux inventaires ne se comparent que si l'effort est comparable — c'est l'erreur la plus fréquente dans la comparaison de données historiques et actuelles.
- Conclure avec une réserve explicite : « au moins espèces sont présentes », jamais « il y a espèces ».
Proportions : l'abondance relative est une proportion ; elle se compare entre milieux, ce que ne fait pas l'effectif brut.
| Taxon | Prairie A | Prairie B | ||
|---|---|---|---|---|
| effectif | part | effectif | part | |
| Coléoptères | ||||
| Hyménoptères | ||||
| Diptères | ||||
| Lépidoptères | ||||
| Hémiptères | ||||
| Orthoptères | ||||
| Total |
Les deux prairies ont la même richesse ( taxons) et le même effectif total ( individus). Elles n'ont pourtant rien de commun : dans la prairie B, un seul taxon rassemble plus de quatre individus sur cinq. Un indicateur unique — la richesse — les aurait déclarées identiques.
7.2.3 La métagénomique : compter sans voir
La métagénomique consiste à extraire et à séquencer l'ADN présent dans un échantillon de milieu — une poignée de sol, un litre d'eau, un prélèvement intestinal — sans avoir isolé ni cultivé aucun organisme. On parle d'ADN environnemental pour l'ADN libéré dans le milieu par les êtres vivants (cellules mortes, mucus, excréments).
L'identification repose sur un code-barres génétique : un court fragment d'ADN, choisi parce qu'il varie d'une espèce à l'autre mais peu à l'intérieur d'une espèce. On compare les séquences obtenues à une base de référence. Une séquence qui ne correspond à rien est le signe d'un organisme inconnu — et c'est très fréquent.
Méthode : Exploiter des résultats de métagénomique
- Identifier ce qui a été prélevé : quel milieu, quel volume, quelle profondeur, à quelle date. Un litre d'eau de rivière renseigne sur quelques centaines de mètres en amont, pas sur le bassin entier.
- Distinguer les séquences attribuées et non attribuées. Une séquence attribuée correspond à une espèce déjà dans la base ; les autres révèlent des organismes non répertoriés. Leur proportion, souvent élevée, est la mesure directe de ce qui reste à découvrir.
- Lire le nombre de séquences comme une abondance relative, avec prudence. Une espèce peut libérer beaucoup d'ADN sans être abondante ; la méthode donne une présence fiable et une abondance approximative.
- Vérifier les témoins. Un échantillon contrôle sans ADN doit rester vide ; sinon il y a contamination, risque majeur de la technique.
- Conclure sur ce que la méthode permet et sur ce qu'elle ne permet pas : elle détecte des espèces discrètes, nocturnes ou microscopiques, mais ne dit ni l'âge, ni l'état de santé, ni si l'animal est encore vivant.
Un gramme de sol forestier contient de l'ordre de à bactéries, appartenant à des milliers d'espèces différentes, dont la plupart n'ont jamais été cultivées en laboratoire — on estime que moins d'un pour cent des bactéries du sol savent pousser sur les milieux de culture usuels. Pendant un siècle, la microbiologie n'a donc vu que cette fraction : les techniques de séquençage ont ouvert un continent. C'est un cas remarquable où un changement de méthode, et non de théorie, a multiplié par cent le catalogue du vivant.
7.3 Estimer un effectif : la capture-marquage-recapture
7.3.1 Le savoir : une quatrième proportionnelle
La méthode de capture-marquage-recapture repose sur des calculs effectués sur un échantillon. Si on suppose que la proportion d'individus marqués est identique dans l'échantillon de recapture et dans la population totale, l'effectif de celle-ci s'obtient par le calcul d'une quatrième proportionnelle.
Le raisonnement tient en une phrase. On capture individus, on les marque, on les relâche, on laisse le temps qu'ils se mélangent, puis on capture individus au hasard, parmi lesquels portent la marque. Si le mélange s'est bien fait, la proportion de marqués dans la seconde capture doit être la même que dans la population entière :
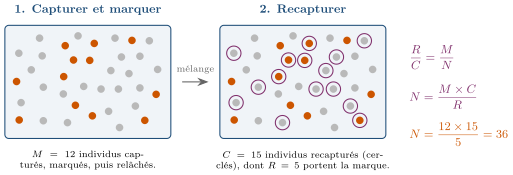
sont marqués (en orange), puis relâchés ; une seconde capture de quinze individus (cerclés) en contient cinq marqués. La proportion de marqués dans l'échantillon, , est supposée égale à la proportion de marqués dans la population, — d'où , qui est ici l'effectif réel du bassin.</div>
Méthode : Estimer une abondance par capture-marquage-recapture
- Nommer les trois nombres : marqués au premier passage, capturés au second, marqués parmi eux. Les confondre est l'erreur classique ; est inclus dans .
- Poser l'égalité des proportions et l'écrire avant tout calcul. C'est une quatrième proportionnelle, résolue par produit en croix.
- Calculer et arrondir à l'entier : un effectif est un nombre entier.
- Vérifier la vraisemblance : doit être supérieur à et à . Si est très petit (moins de ou ), l'estimation est très imprécise ; le signaler.
- Contrôler les hypothèses, ce qui est la partie la plus importante du travail (voir ci-dessous).
Proportions ; quatrième proportionnelle : la méthode n'est rien d'autre qu'un produit en croix. Toute la biologie est dans les hypothèses, pas dans le calcul.
La formule est immédiate ; sa validité ne l'est pas. Elle suppose :
- une population fermée entre les deux captures : ni naissance, ni mort, ni migration. D'où l'intervalle de quelques jours seulement ;
- un mélange complet des marqués dans la population ;
- des marques durables et non nuisibles : une bague qui tombe fait sous-estimer les marqués, donc surestimer ;
- une capture au hasard, chaque individu ayant la même chance d'être pris ;
- aucun effet du marquage sur le comportement.
Le point est le plus souvent pris en défaut. Certains animaux, ayant appris que le piège contient de la nourriture, y reviennent : on les appelle trap-happy, et ils gonflent , donc font sous-estimer . D'autres, effrayés, évitent le piège (trap-shy) et font surestimer . Savoir dans quel sens une hypothèse fausse déplace le résultat vaut mieux que de savoir refaire le calcul.
Méthode : Quantifier l'effectif d'un taxon à partir d'un échantillonnage
sur une surface</h4><div class="text-gray-700 leading-relaxed font-sans text-xs select-text"> Lorsqu'on ne marque pas, mais qu'on compte sur des surfaces témoins :
- Calculer la densité sur les placettes échantillonnées : densité effectif compté surface échantillonnée. C'est une grandeur quotient, en individus par mètre carré ou par hectare.
- Vérifier que les placettes sont représentatives : tirées au hasard, et non choisies « là où il y en a ».
- Multiplier par la surface totale du milieu : effectif estimé densité surface totale.
- Estimer la dispersion en comparant les placettes entre elles. Si les densités varient du simple au décuple, l'extrapolation est fragile et il faut le dire.
- Ne jamais extrapoler hors du milieu échantillonné. Une densité mesurée en lisière ne vaut pas au cœur du massif.
Sur placettes de m tirées au hasard dans une prairie de hectares, on compte au total terriers occupés. Densité : terrier par m. Surface totale : ha m. Effectif estimé : terriers. Si l'on sait par ailleurs qu'un terrier abrite en moyenne individus, la population est estimée à environ campagnols. Chaque étape ajoute une hypothèse : c'est pourquoi le résultat s'annonce comme un ordre de grandeur, jamais comme un décompte.
7.4 La fluctuation d'échantillonnage et l'intervalle de confiance
7.4.1 Le savoir : un échantillon n'est jamais la population
À partir d'un seul échantillon, l'effectif d'une population peut également être estimé à l'aide d'un intervalle de confiance. Une telle estimation est toujours assortie d'un niveau de confiance strictement inférieur à en raison de la fluctuation des échantillons. Pour un niveau de confiance donné, l'estimation est d'autant plus précise que la taille de l'échantillon est grande.
Reprenons l'exemple du bassin. Si l'on refaisait la recapture dix fois de suite, on ne retrouverait pas dix fois le même nombre de marqués : le hasard du prélèvement ferait varier , donc l'estimation de . C'est la fluctuation d'échantillonnage, et elle n'est pas une erreur de manipulation : elle est irréductible.
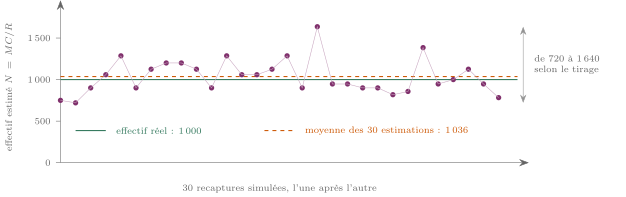
capture-marquage-recapture sur une population de individus simulée ( marqués, recapturés à chaque fois). Aucune n'est fausse : chacune est le résultat honnête d'un tirage au hasard. La moyenne s'approche de la valeur vraie ; une estimation isolée peut s'en écarter de moitié.</div>
Soit la proportion observée sur un échantillon de taille . Un intervalle de confiance de la proportion inconnue dans la population, au niveau de confiance de , est Le niveau de confiance de signifie que si l'on répétait un très grand nombre de fois l'opération « prélever un échantillon et calculer l'intervalle », environ des intervalles obtenus contiendraient la vraie valeur . Cette formule s'emploie pour et ; en dehors, elle reste utilisable comme majoration prudente, plus large que nécessaire.
Il ne dit pas qu'il y a de chances que soit dans l'intervalle que vous venez de calculer : est un nombre fixé, il y est ou il n'y est pas. Le porte sur la méthode, pas sur le résultat particulier. La nuance parait byzantine ; elle est en réalité au cœur de ce que peut et ne peut pas dire une statistique. Une expérience unique ne prouve jamais rien à elle seule ; c'est un protocole répétable qui fait la preuve.
Méthode : Utiliser une formule d'intervalle de confiance à
- Identifier la proportion observée et la taille de l'échantillon . Attention : est la taille de l'échantillon, pas celle de la population.
- Calculer , la demi-largeur de l'intervalle.
- Écrire l'intervalle , en tronquant à et à si nécessaire : une proportion négative n'a pas de sens.
- Traduire en effectif si la question le demande. Si , alors : à la borne haute de correspond la borne basse de . L'inversion du sens est l'erreur la plus fréquente.
- Commenter la largeur. La demi-largeur varie en : pour diviser l'incertitude par , il faut multiplier l'échantillon par . C'est le prix de la précision, et il est cher.
Fluctuation d'échantillonnage ; intervalle de confiance : la formule vient du programme de mathématiques de première ; elle est donnée, elle n'est pas à démontrer.
Reprenons une population où individus ont été marqués.
Cas 1. On recapture individus, dont marqués. Alors et . L'intervalle de confiance pour la proportion de marqués est . En effectif : L'estimation ponctuelle vaut , mais l'intervalle va du simple au quintuple : autant dire qu'on ne sait presque rien.
Cas 2. On quadruple l'effort : , (même proportion). Alors et l'intervalle de la proportion devient , soit La largeur a été divisée par deux, exactement comme le prédit le . Quadrupler le travail de terrain pour diviser l'incertitude par deux : voilà à quoi ressemble concrètement la contrainte statistique dans le métier d'écologue.
Méthode : Simuler des séries de recaptures et visualiser la fluctuation
Le programme demande de faire l'expérience soi-même, sur tableur ou en Python.
- Fixer une population virtuelle dont on connait l'effectif — c'est le point clé : on triche, pour pouvoir comparer l'estimation à la vérité.
- Marquer individus et tirer au hasard individus sans remise. Sur tableur, on affecte à chaque individu un nombre aléatoire et l'on retient les plus petits.
- Compter et calculer .
- Répéter l'opération plusieurs dizaines de fois, en recopiant la ligne vers le bas.
- Moyenner les estimations : la moyenne s'approche de beaucoup mieux qu'aucune estimation isolée.
- Représenter le nuage des estimations et l'étendue observée. On constate alors de ses yeux ce qu'aucune formule ne fait sentir : la méthode est juste en moyenne et imprécise à chaque essai.
7.5 Le modèle de Hardy-Weinberg
7.5.1 Le savoir : les populations changent
Hardy-Weinberg
</div><div class='text-gray-700 leading-relaxed font-sans text-xs select-text'> La composition génétique des populations d'une espèce change de génération en génération.Le modèle mathématique de Hardy-Weinberg utilise la théorie des probabilités pour décrire le phénomène aléatoire de transmission des allèles dans une population. En assimilant les probabilités à des fréquences pour des effectifs de grande taille (loi des grands nombres), le modèle prédit que la structure génétique d'une population de grand effectif est stable d'une génération à l'autre sous certaines conditions (absence de migration, de mutation, de sélection et de dérive). Cette stabilité théorique est connue sous le nom d'équilibre de Hardy-Weinberg.
Un gène occupe une position précise sur un chromosome ; ses versions sont ses allèles. Un individu diploïde possède deux allèles par gène, un de chaque parent : c'est son génotype. Avec deux allèles et , trois génotypes sont possibles : et (homozygotes), (hétérozygote).
La fréquence allélique de , notée , est la proportion d'allèles parmi tous les allèles de ce gène dans la population. On note celle de , avec . La fréquence génotypique est la proportion d'individus de chaque génotype.
Un individu apporte deux allèles , un individu en apporte un. Si , et désignent les fréquences génotypiques, alors C'est le calcul le plus utilisé du chapitre : on l'écrira à chaque génération.
7.5.2 La loi, et sa démonstration
Dans une population idéale — effectif infini, unions au hasard, absence de mutation, de migration, de sélection et de dérive — les fréquences génotypiques à la génération suivante s'obtiennent à partir des fréquences alléliques et de la génération parentale par avec .
De plus les fréquences alléliques ne changent pas d'une génération à l'autre : les fréquences génotypiques sont donc constantes à partir de la seconde génération, quelle qu'ait été la composition de la population de départ. C'est l'équilibre de Hardy-Weinberg.
Démonstration (Par un tableau croisé de probabilités)
Chaque parent produit des gamètes ; un gamète porte un seul allèle. Sous l'hypothèse d'unions au hasard, tout se passe comme si l'on tirait indépendamment un gamète paternel et un gamète maternel dans un immense réservoir où la proportion de vaut et celle de vaut .
L'indépendance des deux tirages permet de multiplier les probabilités :
Le facteur vient de ce que l'hétérozygote s'obtient de deux façons — c'est l'erreur la plus fréquente que de l'oublier.
Calculons maintenant les fréquences alléliques de cette nouvelle génération : Donc : les fréquences alléliques sont inchangées. Comme les fréquences génotypiques de la génération suivante ne dépendent que de et , elles seront identiques. La population est stationnaire dès la seconde génération.
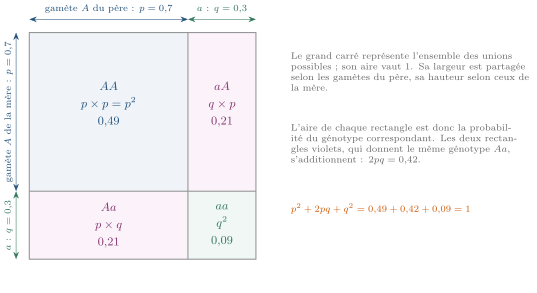
carré unité est découpé horizontalement et verticalement dans les proportions et des gamètes ; chaque rectangle a pour aire la probabilité du génotype qu'il représente. L'hétérozygote occupe deux rectangles : c'est l'origine géométrique du facteur dans .</div>
Méthode : Établir les relations entre les probabilités des génotypes de
deux générations successives</h4><div class="text-gray-700 leading-relaxed font-sans text-xs select-text">
- Partir des fréquences génotypiques de la génération : , , , dont la somme vaut .
- Calculer les fréquences alléliques du réservoir de gamètes :
- Vérifier avant de continuer.
- Appliquer le tableau croisé pour la génération :
- Recalculer et constater qu'il est égal à : la suite est constante. Les fréquences génotypiques le sont donc aussi dès le rang .
- Conclure en une phrase : la composition de départ n'a d'effet que sur la première génération ; ensuite, seul compte.
Tableaux croisés ; probabilités conditionnelles ; suites et relations de récurrence : le tableau croisé du théorème est une loi conjointe ; la relation est une relation de récurrence, et c'est la plus simple qui soit, celle d'une suite constante.
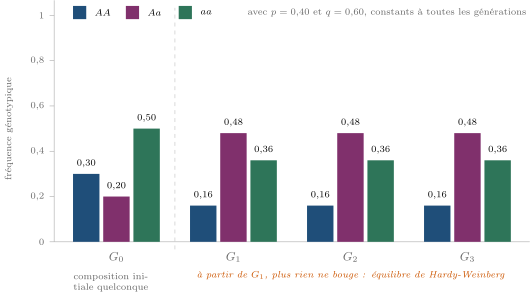
population de départ éloignée de l'équilibre ( ; ; ). Dès la première génération, les proportions deviennent , , et n'en bougent plus. Le modèle ne dit pas que rien ne change jamais : il dit que rien ne change plus, une fois passé le premier brassage.</div>
7.5.3 Le vérifier soi-même, sur tableur ou en Python
Méthode : Produire un calcul montrant la constance des fréquences
génotypiques</h4><div class="text-gray-700 leading-relaxed font-sans text-xs select-text">
- Coder l'état d'une génération par les trois fréquences génotypiques, ou par la seule fréquence allélique .
- Écrire le passage d'une génération à la suivante en deux temps : d'abord et à partir des génotypes, puis , , . Ne jamais sauter l'étape intermédiaire : c'est elle qui contient toute la biologie.
- Boucler sur quelques générations et afficher les résultats.
- Vérifier à chaque ligne que la somme des trois fréquences vaut : c'est le contrôle qui détecte les fautes de frappe.
- Faire varier la composition de départ et constater que , , sont identiques dès lors que est le même. C'est la conclusion attendue.
# Modele de Hardy-Weinberg : evolution des frequences genotypiques
gen = {"AA": 0.30, "Aa": 0.20, "aa": 0.50}   # generation 0, quelconque

for n in range(4):
    total = gen["AA"] + gen["Aa"] + gen["aa"]
    print(f"G{n} : AA={gen['AA']:.4f}  Aa={gen['Aa']:.4f} "
          f" aa={gen['aa']:.4f}  (somme = {total:.4f})")
    # frequences alleliques dans le reservoir de gametes
    p = gen["AA"] + gen["Aa"] / 2
    q = gen["aa"] + gen["Aa"] / 2
    # union au hasard des gametes : tableau croise
    gen = {"AA": p * p, "Aa": 2 * p * q, "aa": q * q}
Ce programme affiche :
G0 : AA=0.3000  Aa=0.2000  aa=0.5000  (somme = 1.0000)
G1 : AA=0.1600  Aa=0.4800  aa=0.3600  (somme = 1.0000)
G2 : AA=0.1600  Aa=0.4800  aa=0.3600  (somme = 1.0000)
G3 : AA=0.1600  Aa=0.4800  aa=0.3600  (somme = 1.0000)
Méthode : Exploiter un logiciel de simulation fondé sur le modèle
De nombreux logiciels libres simulent une population soumise au modèle et permettent d'y ajouter une force évolutive. Pour en tirer quelque chose :
- Repérer les paramètres réglables : effectif, fréquence allélique initiale, taux de mutation, coefficient de sélection, taux de migration.
- Faire d'abord tourner le modèle « nu », tous les paramètres perturbateurs à zéro, et vérifier qu'on retrouve bien la constance : c'est le contrôle de la simulation.
- Ne modifier qu'un paramètre à la fois, et prévoir le résultat avant de lancer le calcul. Une simulation dont on n'a pas anticipé l'issue n'apprend rien.
- Répéter chaque essai plusieurs fois avec le même réglage : s'il y a du hasard, deux essais identiques ne donnent pas le même résultat, et c'est une information.
- Conclure sur le rôle du paramètre, pas sur un essai isolé.
7.6 Quand le modèle est démenti : les forces évolutives
7.6.1 Le savoir : les écarts ont un sens
Les limites du modèle s'expriment dans les écarts entre les fréquences observées sur une population naturelle et les résultats du modèle trouvent leur explication dans les processus réels mis en jeu notamment par les effets de forces évolutives (mutation, sélection, dérive, etc.).
Le modèle de Hardy-Weinberg décrit une population où rien ne se passe. Aucune population réelle ne satisfait ses conditions. On pourrait en conclure qu'il est inutile : ce serait exactement se tromper. Un modèle idéal sert de référence. Il répond à la question « que verrait-on si aucune force n'agissait ? », de sorte que tout écart devient un signal qu'il faut expliquer. C'est le même raisonnement qu'en mécanique avec le principe d'inertie : un corps qui n'accélère pas ne demande pas d'explication, un corps qui accélère en demande une, et cette explication s'appelle une force.
- La mutation crée de nouveaux allèles. C'est la source première de toute variation ; sans elle, l'évolution n'aurait pas de matière première. Ses taux sont faibles, de l'ordre de à par gène et par génération, mais ils s'appliquent à des milliards d'individus.
- La sélection naturelle modifie les fréquences alléliques parce que certains génotypes laissent plus de descendants que d'autres dans un environnement donné. Elle est orientée : c'est la seule force qui produise de l'adaptation.
- La dérive génétique est la variation aléatoire des fréquences d'une génération à l'autre, due au fait qu'un effectif fini ne transmet qu'un échantillon de ses allèles. Elle n'est pas orientée, et son ampleur est d'autant plus grande que l'effectif est petit.
- La migration (ou flux de gènes) fait entrer et sortir des allèles. Elle tend à homogénéiser les populations reliées entre elles.
S'y ajoute le régime de reproduction : si les unions ne sont pas au hasard — préférence pour le semblable, autofécondation chez les plantes, consanguinité — les fréquences génotypiques s'écartent de , , alors même que les fréquences alléliques n'ont pas bougé.
7.6.2 La dérive : le hasard n'a pas besoin d'avoir raison
Voici le point le plus contre-intuitif de tout le chapitre. Dans une petite population, une fréquence allélique change sans qu'aucun allèle soit meilleur qu'un autre, simplement parce que le tirage des gamètes est un tirage au hasard, et qu'un petit échantillon fluctue beaucoup. Au bout d'un certain nombre de générations, un allèle finit par disparaitre et l'autre par occuper toute la population : on dit qu'il est fixé. La diversité génétique est alors perdue, et une mutation seule pourrait la recréer.
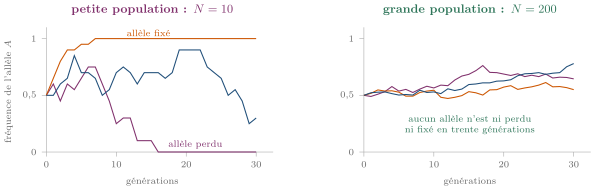
d'une fréquence allélique de et soumises au seul hasard — aucune sélection. À gauche, avec dix individus, deux des trois trajectoires aboutissent en quelques dizaines de générations à la perte ou à la fixation de l'allèle. À droite, avec deux cents individus, les fréquences ne s'écartent guère de leur valeur initiale. La dérive n'est pas une force : c'est une conséquence du petit nombre.</div>
La dérive n'a pas de direction : elle peut aussi bien fixer un allèle désavantageux qu'éliminer un allèle avantageux. La sélection, elle, en a une. Dans une grande population, la sélection l'emporte sur la dérive ; dans une très petite, la dérive peut l'emporter sur la sélection. C'est pourquoi la biologie de la conservation s'intéresse tant aux effectifs : en dessous d'un certain seuil, une population perd sa diversité même si aucun individu n'est tué. Un ordre de grandeur utile : à chaque génération, une population de individus perd environ de sa diversité génétique. Pour , cela fait par génération, soit près de la moitié en trente générations.
Méthode : Analyser une situation d'évolution expliquant un écart au
modèle de Hardy-Weinberg</h4><div class="text-gray-700 leading-relaxed font-sans text-xs select-text">
- Calculer les fréquences alléliques observées à partir des effectifs génotypiques réels : .
- Calculer les effectifs attendus sous Hardy-Weinberg : , , .
- Comparer observé et attendu, génotype par génotype, et repérer le sens de l'écart : excès ou déficit d'hétérozygotes ? d'un homozygote en particulier ?
- Traduire l'écart en hypothèse biologique.
- Déficit d'un homozygote : sélection contre lui (maladie, létalité).
- Excès d'hétérozygotes : avantage de l'hétérozygote, ou brassage récent entre deux populations différentes.
- Déficit d'hétérozygotes : consanguinité, autofécondation, ou mélange non brassé de deux populations (les unions ne sont pas au hasard).
- Chercher une confirmation indépendante : la biologie de l'espèce, la géographie, l'histoire de la population. Un écart statistique suggère une hypothèse ; il ne la démontre pas.
- Vérifier qu'aucune explication triviale ne suffit : effectif trop faible pour conclure, erreur de génotypage, échantillon non aléatoire.
Dans une région où le paludisme est endémique, on génotype personnes pour le gène de l'hémoglobine, dont l'allèle provoque, à l'état homozygote, la drépanocytose. On observe : individus , , .
Fréquences alléliques observées.
Effectifs attendus sous Hardy-Weinberg. ; ; .
Comparaison. On observe hétérozygotes pour attendus (excès), et homozygotes pour attendus (déficit de moitié).
Interprétation. Les sont gravement malades et beaucoup meurent avant l'âge adulte : d'où leur déficit. Mais alors, pourquoi l'allèle persiste-t-il à une fréquence aussi élevée que ? Parce que les hétérozygotes , sans être malades, résistent mieux au paludisme que les : ils laissent plus de descendants. La sélection joue donc dans deux sens opposés, et l'équilibre qui en résulte maintient un allèle délétère à haute fréquence. C'est l'un des plus beaux exemples connus de sélection en action chez l'être humain — et il montre qu'un allèle n'est jamais « bon » ou « mauvais » dans l'absolu, mais seulement dans un environnement donné. Hors des zones de paludisme, l'allèle n'a plus aucun avantage.
7.7 Activités humaines, fragmentation et santé
7.7.1 Le savoir
Les activités humaines ont des conséquences sur la biodiversité et ses composantes, dont la variation d'abondance.
L'approche « Une seule santé » consiste à relier la santé humaine, la santé animale et la santé des écosystèmes dans lesquels ils coexistent, ces trois composantes ne pouvant plus être dissociées.
La fragmentation d'une population en plusieurs échantillons de plus faibles effectifs entraine un appauvrissement de sa diversité génétique.
La connaissance et la gestion d'un écosystème permettent d'y préserver une biodiversité.
Les pressions exercées sur la biodiversité sont désormais bien identifiées : destruction et fragmentation des habitats, surexploitation, pollutions, espèces exotiques envahissantes, changement climatique. Leur effet se mesure d'abord sur les abondances, bien avant de se traduire par des extinctions : une espèce peut avoir perdu de ses effectifs sans avoir disparu, et ce déclin passe alors inaperçu du grand public. Un travail publié en sur des réserves naturelles allemandes a ainsi estimé à plus de la baisse de la biomasse d'insectes volants en vingt-sept ans, dans des zones pourtant protégées.
7.7.2 « Une seule santé »
L'approche « Une seule santé » (One Health) pose que la santé humaine, la santé animale et la santé des écosystèmes forment un seul système, et qu'on ne peut agir efficacement sur l'une sans considérer les autres. Elle est portée conjointement par les organisations internationales chargées de la santé, de l'agriculture, de la santé animale et de l'environnement.
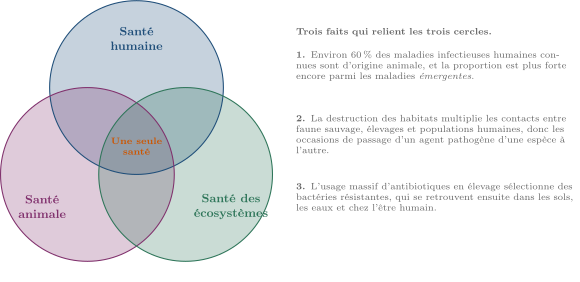
juxtaposés par commodité rhétorique : chacun communique avec les deux autres par des mécanismes biologiques identifiés, dont les zoonoses et l'antibiorésistance sont les exemples les mieux documentés.</div>
Méthode : Justifier le concept « Une seule santé »
Pour justifier — et non simplement réciter — le concept, produire trois liens mécanistiques, un par paire de cercles.
- Animal humain : citer une zoonose, maladie transmise de l'animal à l'être humain. Grippes aviaires, rage, maladie de Lyme transmise par les tiques, fièvre Q : les exemples ne manquent pas.
- Écosystème animal et humain : montrer qu'une modification du milieu change les contacts. Défricher une forêt rapproche chauves-souris, rongeurs, élevages et habitations ; réchauffer le climat étend l'aire du moustique tigre, donc celle des arboviroses.
- Humain écosystème, en retour : montrer que nos pratiques modifient les populations microbiennes. L'antibiotique donné à un élevage sélectionne des bactéries résistantes qui ne restent pas dans l'élevage.
- Conclure par la conséquence pratique : une politique de santé qui ne surveillerait que les humains arriverait toujours trop tard. C'est pourquoi les dispositifs de veille sanitaire intègrent désormais des réseaux vétérinaires et environnementaux.
Méthode : Étudier un exemple de modification d'un écosystème et ses
conséquences sanitaires</h4><div class="text-gray-700 leading-relaxed font-sans text-xs select-text">
- Décrire la modification : quoi, où, quand, à quelle échelle (déforestation, drainage d'une zone humide, mise en culture, introduction d'une espèce).
- Identifier les espèces gagnantes et perdantes. Une perturbation ne fait jamais que détruire : elle redistribue. Les espèces généralistes, à reproduction rapide, sont typiquement gagnantes.
- Suivre la chaîne écologique : qui mange qui, qui héberge quel agent pathogène, qui pique qui.
- Relier à la santé humaine par un mécanisme explicite, jamais par une corrélation seule.
- Chercher les effets en retour sur l'agriculture, l'eau, le climat local.
- Évaluer la réversibilité : peut-on revenir en arrière, en combien de temps, à quel prix ?
L'assèchement d'une zone humide pour la mettre en culture supprime les libellules, les amphibiens et les poissons qui consomment les larves de moustiques. Les mares résiduelles, les fossés et les réserves d'irrigation offrent en revanche des gîtes de ponte sans prédateurs. Résultat parfois observé : les moustiques deviennent plus abondants après l'assèchement qu'avant. L'exemple est utile parce qu'il contredit l'intuition — « moins d'eau, moins de moustiques » — et qu'il montre qu'un écosystème complet régule des populations qu'un milieu appauvri laisse proliférer. Il illustre exactement ce que « Une seule santé » veut dire : la santé humaine dépend ici du maintien d'une chaîne alimentaire.
7.7.3 La fragmentation : un modèle géométrique simple
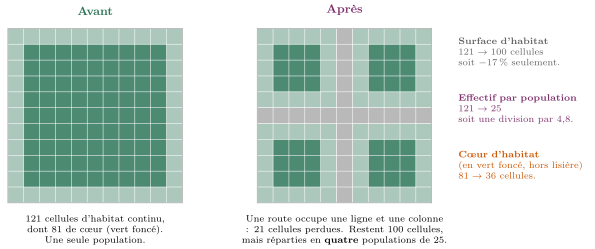
que de la surface, mais elle divise l'effectif de chaque population par près de cinq et le cœur d'habitat par plus de deux. C'est la raison pour laquelle un aménagement peut être écologiquement grave alors même que l'emprise au sol qu'il déclare est faible.</div>
Méthode : Utiliser un modèle géométrique en quadrillage pour évaluer une
fragmentation</h4><div class="text-gray-700 leading-relaxed font-sans text-xs select-text">
- Quadriller le milieu et compter les cellules d'habitat avant aménagement. C'est la surface de référence.
- Tracer l'infrastructure (route, voie ferrée, canal, clôture) et compter les cellules qu'elle occupe. En déduire la surface détruite, en valeur absolue et en pourcentage.
- Compter les fragments obtenus et l'effectif de chacun. C'est ici que le résultat devient frappant : la surface baisse peu, l'effectif par fragment s'effondre.
- Retirer les cellules de lisière si l'espèce y est vulnérable (prédation, dérangement, dessèchement) : on obtient le cœur d'habitat, souvent bien plus réduit que la surface brute.
- Traduire en conséquence génétique : chaque fragment devient une petite population, soumise à la dérive et à la consanguinité, et perd environ de sa diversité par génération.
- Chercher les remèdes : passages à faune, corridors écologiques, restauration d'une continuité. Un seul individu migrant par génération suffit, en théorie, à limiter fortement la divergence entre fragments.
Proportions ; grandeurs et mesures : comparer un pourcentage de surface et un facteur d'effectif est l'objet même de l'exercice.
Méthode : Montrer par simulation les effets d'un faible effectif sur les
fréquences alléliques</h4><div class="text-gray-700 leading-relaxed font-sans text-xs select-text">
- Régler la simulation sur le modèle nu d'abord : ni mutation, ni sélection, ni migration. Ainsi, tout ce qu'on observera viendra du seul effectif.
- Lancer plusieurs fois le même réglage avec un petit effectif ( ou ). Constater que les trajectoires diffèrent d'un essai à l'autre : c'est la signature du hasard.
- Relever le nombre de générations avant fixation ou perte et observer qu'il est court.
- Refaire avec un grand effectif ( ou ) et constater que les fréquences restent proches de leur valeur initiale.
- Conclure quantitativement : l'ampleur des fluctuations décroit quand augmente. C'est le même que pour l'intervalle de confiance — la dérive génétique est une fluctuation d'échantillonnage, appliquée aux gamètes.
7.7.4 Protéger, gérer
Méthode : Analyser des documents sur la protection de populations à
faibles effectifs</h4><div class="text-gray-700 leading-relaxed font-sans text-xs select-text">
- Relever l'effectif et sa tendance : combien d'individus, combien d'individus reproducteurs, sur quelle aire, avec quelle évolution récente.
- Identifier la cause du déclin — habitat, chasse, pollution, maladie, espèce invasive. Une mesure de protection qui ne s'attaque pas à la cause ne fait que retarder l'échéance.
- Classer les mesures : protection réglementaire de l'espèce, protection de l'habitat, corridors, reproduction en captivité, réintroduction, translocation d'individus pour restaurer la diversité génétique.
- Évaluer la diversité génétique restante, et pas seulement l'effectif. Une population remontée à mille individus à partir de vingt fondateurs reste génétiquement pauvre : le nombre est revenu, pas la diversité.
- Chercher les effets sociaux : acceptation locale, indemnisation des dommages, conflits d'usage. Un programme rejeté par les riverains échoue, quelle que soit sa qualité scientifique.
- Juger sur la durée : les résultats en biologie de la conservation se mesurent en décennies.
L'éléphant de mer du Nord a été chassé jusqu'à ne plus compter, à la fin du XIXe siècle, qu'une poignée d'individus survivants. Protégée, l'espèce a reconstitué depuis une population de plus de cent mille individus. Son effectif est donc sauvé — mais sa diversité génétique, non : les analyses montrent une variabilité extraordinairement faible, héritée des quelques fondateurs. La population est aujourd'hui nombreuse et génétiquement fragile, donc vulnérable à toute maladie nouvelle. C'est la démonstration la plus claire qu'effectif et diversité sont deux grandeurs distinctes, et que la seconde ne se reconstitue pas au même rythme que la première.
Méthode : Identifier les critères de gestion durable d'un écosystème
Un écosystème est géré durablement lorsque les prélèvements et les perturbations ne dépassent pas sa capacité de renouvellement. En pratique, on vérifie six points.
- Connaissance préalable : un inventaire et un suivi dans le temps. On ne gère pas ce qu'on n'a pas mesuré.
- Prélèvement inférieur au renouvellement : ne pas pêcher plus que la production annuelle, ne pas couper plus que l'accroissement du bois.
- Maintien de la structure et des fonctions : diversité des âges et des espèces, présence des prédateurs et des décomposeurs, continuité écologique.
- Maintien de la diversité génétique : éviter les effectifs trop faibles et l'isolement des populations.
- Réversibilité et principe de précaution : privilégier les interventions qu'on peut arrêter ou corriger.
- Association des acteurs : usagers, riverains, professionnels. La gestion durable est autant une question sociale qu'écologique — c'est ce qui distingue la gestion de la simple mise sous cloche.
7.8 Histoire des sciences : de l'échantillonnage naturaliste aux données
génomiques
- — Nommer. Carl von Linné publie le Systema naturae, puis fixe en la nomenclature binomiale : chaque espèce reçoit un nom de genre et un nom d'espèce. L'apport est méthodologique avant d'être théorique : sans un système de noms stable et universel, il est impossible de savoir si deux naturalistes parlent du même être vivant. Le catalogue du vivant commence là.
- — Explorer et compter. Alexander von Humboldt, puis Charles Darwin et Alfred Russel Wallace, rapportent de leurs voyages des collections et, surtout, des relevés localisés. Humboldt introduit l'idée que la répartition des espèces obéit à des règles — l'étagement de la végétation en altitude — et que ces règles se cartographient. Wallace montre en que deux faunes radicalement différentes se côtoient de part et d'autre d'une ligne imaginaire dans l'archipel indonésien : la biogéographie est née. Le naturaliste cesse d'être un collectionneur pour devenir un mesureur.
— La première recapture. Le Danois Christian Mortensen bague des étourneaux avec des anneaux d'aluminium numérotés pour suivre leurs migrations. L'idée de marquer un individu pour le retrouver ensuite fonde toutes les méthodes de suivi de populations.
— Hardy et Weinberg, indépendamment. Un problème agitait la jeune génétique : si un allèle est dominant, ne devrait-il pas envahir peu à peu la population ? Le mathématicien anglais Godfrey Harold Hardy, sollicité par un généticien, publie dans Science une note d'une page montrant qu'il n'en est rien : les proportions se stabilisent immédiatement. Il juge son propre résultat si évident qu'il s'excuse presque de l'écrire. La même année, indépendamment, le médecin allemand Wilhelm Weinberg établit le même résultat de manière plus complète. L'épisode dit deux choses : que le même énoncé peut être trouvé deux fois quand la question est mûre, et qu'un résultat « évident » pour un mathématicien peut débloquer une discipline entière.
- — La synthèse. Ronald Fisher, John Haldane et Sewall Wright construisent la génétique des populations, en montrant que la sélection naturelle de Darwin et l'hérédité de Mendel, longtemps opposées, sont compatibles — mieux, qu'elles s'exigent l'une l'autre. Wright y introduit l'importance de la dérive dans les petites populations, contre Fisher qui privilégiait les grandes. Le débat, âpre, a nourri la discipline pendant quarante ans.
- — Lire l'ADN. La structure en double hélice, puis les méthodes de séquençage mises au point par Frederick Sanger, ouvrent l'accès direct à la variabilité génétique. On cesse de deviner les génotypes à partir des apparences : on les lit.
Années — L'échantillon devient une séquence. Le séquençage à haut débit, puis le code-barres génétique et l'ADN environnemental, changent l'échelle : on inventorie une rivière entière à partir d'un litre d'eau, et l'on découvre des pans entiers du vivant microbien qu'aucune culture n'avait révélés. Le naturaliste de terrain n'a pas disparu — il faut toujours aller prélever — mais il travaille désormais avec un séquenceur.
Trois fois, un changement de méthode a produit plus qu'un changement de théorie : nommer (Linné), marquer (Mortensen), séquencer (Sanger et ses successeurs). On dit volontiers que la science avance par grandes idées ; elle avance au moins autant par instruments et par protocoles. Et l'épisode de rappelle un troisième moteur : l'importation d'un outil venu d'ailleurs — ici, un calcul de probabilités élémentaire, apporté par un mathématicien qui ne s'intéressait pas à la biologie.
7.9 Bilan
Ce qu'il faut savoir
- Il existe sur Terre un grand nombre d'espèces, dont une part importante reste à découvrir. La biodiversité se mesure par échantillonnage, et se décrit aussi par l'abondance d'une population, d'une espèce ou d'un taxon.
- La capture-marquage-recapture repose sur l'égalité supposée de la proportion d'individus marqués dans l'échantillon de recapture et dans la population : l'effectif s'en déduit par une quatrième proportionnelle.
- Un effectif peut aussi être estimé par un intervalle de confiance, dont le niveau est strictement inférieur à du fait de la fluctuation d'échantillonnage ; à niveau fixé, la précision croit avec la taille de l'échantillon.
- La composition génétique des populations change de génération en génération. Le modèle de Hardy-Weinberg prédit, sous des conditions restrictives (grand effectif, unions au hasard, ni migration, ni mutation, ni sélection, ni dérive), des fréquences génotypiques , , stables dès la seconde génération.
- Les écarts observés entre populations réelles et modèle s'expliquent par les forces évolutives : mutation, sélection, dérive, migration, régime des unions.
- Les activités humaines modifient la biodiversité, à commencer par les abondances. L'approche « Une seule santé » lie santé humaine, santé animale et santé des écosystèmes. La fragmentation d'une population appauvrit sa diversité génétique. La connaissance et la gestion d'un écosystème permettent d'y préserver une biodiversité.
Ce qu'il faut savoir faire
- Exploiter des données de terrain ou d'exploration pour calculer une richesse spécifique et des abondances relatives ; exploiter des résultats de métagénomique.
- Quantifier un effectif à partir de résultats d'échantillonnage, et estimer une abondance par capture-marquage-recapture.
- Simuler des séries de recaptures, les moyenner et visualiser la fluctuation ; utiliser une formule donnée d'intervalle de confiance à pour estimer un paramètre inconnu.
- Établir les relations entre les probabilités des génotypes de deux générations successives ; produire un calcul sur tableur ou un programme Python montrant la constance à partir de la seconde génération ; exploiter un logiciel de simulation ; analyser une situation d'évolution expliquant un écart au modèle.
- Étudier un exemple de modification d'écosystème et ses conséquences sanitaires ; justifier le concept « Une seule santé ».
- Utiliser un quadrillage pour calculer l'incidence d'une fragmentation ; montrer par simulation les effets d'un faible effectif sur les fréquences alléliques ; analyser des mesures de protection ; identifier les critères de gestion durable d'un écosystème.
Quatre formules à retenir
pour la capture-marquage-recapture. pour l'intervalle de confiance à . , , pour les fréquences génotypiques à l'équilibre. pour la fraction de diversité génétique perdue par génération.
Ce que ce chapitre dit de la science elle-même
Il enseigne d'abord qu'un modèle faux peut être le plus utile de tous. Aucune population ne satisfait les conditions de Hardy-Weinberg — effectif infini, unions au hasard, aucune mutation, aucune sélection. Le modèle n'en est pas moins l'outil central de la génétique des populations, précisément parce qu'il sert d'étalon : ce qu'il ne prédit pas est ce qu'il faut expliquer. Un bon modèle n'est pas celui qui décrit tout, c'est celui dont les échecs sont informatifs.
Il enseigne ensuite qu'on peut connaitre sans compter. Nous ne saurons jamais combien de truites vivent dans une rivière, ni combien d'espèces peuplent une forêt tropicale. Nous savons pourtant en donner des estimations assorties de marges d'erreur calculées, et nous savons dire de combien elles s'améliorent si l'on quadruple l'effort. Cette maitrise de sa propre incertitude est peut-être ce qui distingue le mieux un énoncé scientifique d'une opinion.
Il enseigne enfin que la mesure des choses change la manière de les protéger. Tant qu'on comptait les espèces, une route qui détruit d'un massif paraissait acceptable. Depuis qu'on sait raisonner en effectifs, en fragments et en diversité génétique, la même route apparait pour ce qu'elle est : elle divise une population en quatre. Ce n'est pas la forêt qui a changé, c'est notre manière de la mesurer — et cela suffit à changer la décision.