L'évolution comme grille de lecture du monde
Cours complet · enseignement scientifique (terminale), chapitre 8 · terminale, enseignement scientifique
Travailler ce chapitre sur Adloun Exercices corrigés de ce chapitre
8.1 Introduction : pourquoi notre corps est-il si mal conçu ?
Un ingénieur à qui l'on demanderait de dessiner un être humain ne produirait jamais celui-ci. Il ne ferait pas passer les voies respiratoires et les voies digestives par le même carrefour, où quelques milliers de personnes s'étouffent chaque année. Il ne poserait pas les fibres nerveuses de la rétine devant les cellules qui reçoivent la lumière, ce qui oblige à percer un trou dans l'œil pour laisser sortir le nerf optique — d'où notre point aveugle. Il ne ferait pas descendre un nerf du cerveau jusqu'au cœur pour le faire remonter au larynx, à quelques centimètres de son point de départ. Il ne mettrait pas des mamelons aux mâles, ni des dents qui ne rentrent pas dans la mâchoire.
Ces bizarreries ne sont pas des accidents individuels : elles sont partagées par des groupes entiers d'espèces, et elles ont une explication commune. Le corps n'a pas été conçu ; il a été bricolé, à partir de ce qui existait déjà, à chaque génération, sans plan et sans possibilité de recommencer. Un être vivant n'est pas un dessin : c'est un manuscrit couvert de ratures, dont chaque état intermédiaire devait être lisible.
C'est ce que dit une phrase souvent citée du généticien Theodosius Dobzhansky, écrite en : « rien en biologie n'a de sens, sinon à la lumière de l'évolution ». Ce chapitre prend cette phrase au sérieux et la met à l'épreuve dans trois domaines très différents.
- L'anatomie. Nous verrons que certains caractères s'expliquent très bien par leur fonction — ils sont adaptatifs — mais que d'autres ne s'expliquent que par leur histoire. Savoir distinguer les deux est le premier savoir-faire du chapitre, et c'est une compétence critique : il est facile, et faux, d'inventer une fonction à tout.
- La médecine. Les micro-organismes évoluent sous nos yeux, en quelques jours. La résistance aux antibiotiques, la reformulation annuelle du vaccin contre la grippe, l'apparition des variants viraux ne sont pas des malchances : ce sont les conséquences prévisibles de la sélection naturelle appliquée à des populations immenses au temps de génération très court.
- L'agriculture. Depuis dix mille ans, l'humanité exerce des pressions de sélection délibérées — la domestication — et des pressions involontaires — les pesticides, qui sélectionnent les ravageurs qui y résistent. Les deux relèvent exactement du même mécanisme.
Et parce que ce mécanisme est d'une remarquable généralité, nous irons voir en fin de chapitre ce qu'il devient hors de la biologie : dans les algorithmes d'optimisation, dans l'évolution des langues, dans la transmission des techniques. Cette dernière partie ne fait pas partie des attendus du programme ; elle est là parce que c'est elle qui donne au chapitre son titre. Une grille de lecture ne vaut que si l'on sait aussi où elle cesse de s'appliquer.
Ce chapitre parle de sélection, d'adaptation, de compétition. Ces mots ont été détournés, depuis le XIXe siècle, pour justifier des hiérarchies sociales et des politiques criminelles. Il faut donc être net : la sélection naturelle décrit ce qui se produit, elle ne prescrit rien. Un caractère répandu n'est pas pour autant souhaitable, un caractère rare n'est pas inférieur, et il n'existe aucune espèce « plus évoluée » qu'une autre — toutes les lignées actuelles ont exactement le même âge. Passer d'un fait à une norme est une faute de raisonnement, et elle porte un nom en philosophie : le sophisme naturaliste.
8.2 Les quatre briques de la grille
8.2.1 Variation, hérédité, tri
Dans toute population, les individus diffèrent les uns des autres : c'est la variation. Elle a trois sources : les mutations de l'ADN, le brassage des chromosomes lors de la reproduction sexuée, et l'influence du milieu sur le développement. Seules les deux premières sont héritables, et ce sont les seules qui comptent pour l'évolution.
Le hasard intervient à trois moments distincts, qu'il ne faut pas confondre.
- Dans l'apparition des variations. Une mutation survient sans rapport avec le besoin de l'organisme. Une bactérie ne « fabrique » pas une résistance parce qu'on lui donne un antibiotique : la mutation était là avant, ou elle apparait au hasard, et l'antibiotique ne fait que trier.
- Dans la transmission des allèles d'une génération à l'autre : c'est la dérive génétique, étudiée au chapitre précédent.
- Dans les évènements historiques : une extinction de masse, une île qui se sépare, un climat qui bascule. On parle de contingence : si l'on « rejouait le film », il ne donnerait pas le même résultat.
La sélection naturelle est le tri, non aléatoire, des variants héritables selon le nombre de descendants qu'ils laissent dans un environnement donné. Elle n'agit pas sur les individus mais sur les fréquences dans la population, et elle n'a ni but, ni prévoyance, ni mémoire : elle ne peut favoriser que ce qui est avantageux maintenant.
Démonstration (Le raisonnement de Darwin, en trois prémisses)
L'argument est purement logique : si les trois prémisses sont vraies, la conclusion l'est nécessairement.
- Variation : les individus d'une population diffèrent.
- Hérédité : une partie de ces différences se transmet à la descendance.
- Reproduction différentielle : dans un milieu aux ressources limitées, tous les individus ne laissent pas le même nombre de descendants, et ce nombre dépend en partie de leurs caractères.
Conclusion : la composition de la population change de génération en génération, les variants qui laissent plus de descendants devenant plus fréquents. Ce n'est pas une hypothèse, c'est une déduction. Tout le travail empirique consiste à vérifier les trois prémisses dans chaque cas concret.
Une adaptation est un caractère façonné par la sélection naturelle pour la fonction qu'il remplit aujourd'hui.
Une exaptation est un caractère apparu pour une raison — ou sans raison — puis recruté pour une fonction différente. Les plumes ont vraisemblablement joué un rôle d'isolation thermique avant d'être utilisées pour le vol.
Une contrainte est ce que l'histoire ou le développement interdisent. Un caractère peut être mauvais et persister parce qu'aucune modification progressive n'y mène sans passer par un état non viable.
Un compromis apparait quand deux exigences s'opposent : la sélection ne maximise alors aucune des deux, elle trouve un équilibre entre elles.
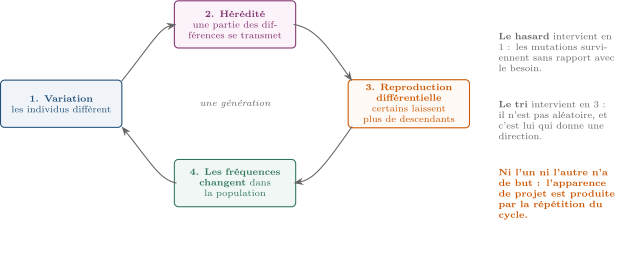
chaque génération. La variation fournit la matière, l'hérédité la conserve, la reproduction différentielle la trie. Le hasard et la nécessité y occupent des places distinctes : ce qui apparait est aléatoire, ce qui reste ne l'est pas.</div>
8.3 L'anatomie comme archive
8.3.1 Le savoir
Les structures anatomiques présentent des particularités surprenantes d'un point de vue fonctionnel, pouvant paraitre sans fonction avérée ou bien d'une étonnante complexité. Elles témoignent de l'évolution des espèces, dont la nôtre. Les caractères anatomiques peuvent être le résultat de la sélection naturelle, mais certains sont mieux expliqués par l'héritage de l'histoire évolutive que par leur fonction.
La dernière phrase est la plus importante du chapitre. Elle affirme qu'il existe deux types d'explications légitimes pour un caractère anatomique — la fonction et l'héritage — et que la première n'est pas toujours la bonne. C'est un garde-fou méthodologique : sans lui, on peut inventer une fonction plausible à n'importe quoi.
8.3.2 Le détour du nerf laryngé récurrent
Le nerf qui commande le larynx part du cerveau. Le larynx est à quelques centimètres du cerveau. Or ce nerf descend jusque dans le thorax, contourne l'arc de l'aorte, et remonte au larynx. Chez l'être humain, le détour mesure une trentaine de centimètres. Chez la girafe, dont le cœur est à deux mètres du crâne, le même nerf parcourt plus de quatre mètres pour relier deux points distants de quelques centimètres.
Aucune fonction connue ne justifie ce trajet. Son explication est historique. Chez les ancêtres poissons des vertébrés, le nerf passait derrière un arc branchial, selon un trajet direct et court. Au cours de l'évolution des tétrapodes, le cœur et les gros vaisseaux ont migré vers l'arrière tandis que le cou s'allongeait, entrainant le nerf avec eux. À aucun moment il n'a été possible de « recâbler » : chaque étape intermédiaire devait donner un animal viable, et un nerf sectionné puis reconnecté ailleurs n'est pas une étape possible. Le trajet s'est donc allongé, génération après génération, sans jamais pouvoir être corrigé.
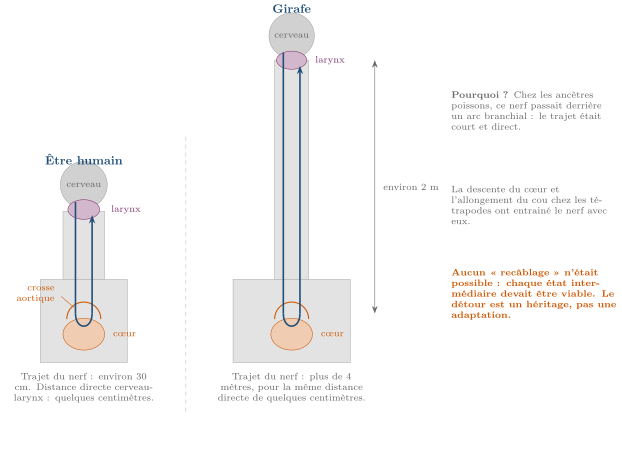
chez la girafe. Ce détour absurde d'un point de vue fonctionnel est l'un des arguments les plus parlants en faveur d'une explication historique de l'anatomie : un concepteur ne l'aurait pas dessiné, une histoire l'explique entièrement.</div>
8.3.3 Quatre autres cas, quatre types d'explication
Le mamelon masculin : une contrainte de construction.
Chez les mammifères, l'embryon suit d'abord un plan de développement commun aux deux sexes ; les ébauches mammaires se forment avant que la différenciation sexuelle n'intervienne. Le mamelon masculin n'a donc pas de fonction : il est le sous-produit d'un programme de développement partagé. Il n'est pas contre-sélectionné parce qu'il ne coute pratiquement rien. Leçon : un caractère peut exister sans avoir jamais été « choisi » par quoi que ce soit.
Les dents de sagesse : une régression en cours.
Les troisièmes molaires ont perdu leur intérêt à mesure que l'alimentation humaine devenait plus tendre — cuisson, broyage, puis transformation industrielle — et que la mâchoire raccourcissait. Résultat : ces dents manquent de place et deviennent souvent une gêne, voire un danger avant l'ère chirurgicale. Chez une part importante de la population, l'une au moins de ces dents ne se forme même plus. Leçon : l'évolution ne supprime pas d'un coup ce qui est devenu inutile ; elle le laisse régresser, avec des variantes selon les individus et les populations.
Le point aveugle de l'œil : une contingence.
Dans la rétine des vertébrés, les cellules photoréceptrices sont tournées vers le fond de l'œil ; la lumière doit donc traverser les couches de neurones et de fibres avant de les atteindre, et ces fibres doivent ressortir en perçant la rétine — d'où une zone dépourvue de photorécepteurs, le point aveugle. Chez les céphalopodes, poulpes et calmars, l'œil a une structure d'ensemble comparable, mais la rétine est orientée dans l'autre sens : les photorécepteurs sont en avant, les fibres derrière, et il n'y a pas de point aveugle. Aucun des deux montages n'est meilleur en soi ; ils résultent de deux histoires embryologiques différentes, figées depuis des centaines de millions d'années. Leçon : le même problème, résolu deux fois indépendamment, a reçu deux réponses distinctes. C'est la signature de la contingence.
L'accouchement humain : un compromis, et un débat.
La naissance est chez l'espèce humaine plus difficile et plus risquée que chez la plupart des mammifères. L'explication classique, proposée en , y voit un compromis entre deux exigences contradictoires : la bipédie, qui impose un bassin étroit, et l'encéphalisation, qui impose une grosse tête. Cette explication est aujourd'hui discutée : d'autres travaux, à partir de , ont avancé que le moment de la naissance serait plutôt déterminé par la limite énergétique du métabolisme maternel, et que la largeur du bassin ne gênerait pas autant la marche qu'on le supposait. Leçon : un exemple peut être à la fois classique, pédagogiquement utile et scientifiquement débattu. Le signaler fait partie de l'honnêteté du cours.
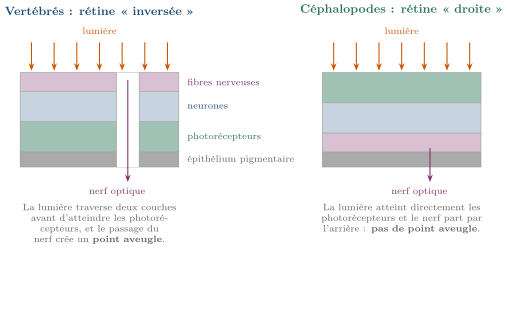
oblige la lumière à traverser les couches nerveuses et impose un point aveugle ; celle des céphalopodes ne présente ni l'un ni l'autre défaut. Les deux fonctionnent très bien. La différence ne s'explique par aucune supériorité : elle est le résultat de deux histoires embryologiques divergentes.</div>
8.3.4 Savoir-faire
Méthode : Expliquer l'origine d'une structure anatomique
Le programme demande de mobiliser quatre concepts : hasard, variation, sélection naturelle, adaptation. Procéder dans cet ordre.
- Décrire précisément la structure et ce qu'elle a de surprenant. Sans description exacte, l'explication tourne à vide.
- Poser la variation. Dans la population ancestrale, ce caractère variait d'un individu à l'autre, et cette variation était héritable. Les variations sont apparues par mutation, donc au hasard et sans rapport avec un besoin.
- Chercher une pression de sélection, en la nommant : prédation, climat, alimentation, compétition sexuelle, agent pathogène. Puis dire dans quel sens elle trie.
- Conclure sur l'adaptation, s'il y a lieu : le caractère est devenu fréquent parce qu'il augmentait le nombre de descendants dans cet environnement-là.
- Envisager l'autre explication. Si aucune pression de sélection plausible n'apparait, chercher du côté de l'héritage : le caractère est-il partagé avec des espèces apparentées ? Est-il un sous-produit d'un programme de développement ? Le résultat d'une contrainte historique ? D'un compromis ?
- Trancher par une comparaison, jamais par la seule plausibilité : comparer avec des espèces proches, avec le registre fossile, avec l'embryologie. Un scénario qui explique tout n'explique rien.
Il est très facile d'inventer une fonction : « le menton sert à renforcer la mâchoire », « la calvitie sert à évacuer la chaleur ». Ces récits se construisent sans effort et ne se réfutent jamais — ce qui est exactement le défaut d'une mauvaise explication scientifique. Deux paléontologues, Stephen Jay Gould et Richard Lewontin, ont critiqué ce réflexe dans un article célèbre de , en le comparant aux histoires que l'on invente pour les enfants. Le remède n'est pas de renoncer aux explications fonctionnelles, mais d'exiger d'elles ce qu'on exige de toute hypothèse : une prédiction testable. Si tel caractère est une adaptation à tel milieu, alors les populations vivant dans un milieu différent ne devraient pas l'avoir. Voilà une phrase qu'on peut aller vérifier.
8.4 L'évolution en direct : microbes, vaccins et antibiotiques
8.4.1 Le savoir
L'évolution permet de comprendre des phénomènes biologiques ayant une importance médicale. L'évolution rapide des organismes microbiens nécessite d'adapter les stratégies prophylactiques, les vaccins et les antibiotiques.
Pourquoi les micro-organismes évoluent-ils si vite ? Trois raisons se multiplient.
- Des effectifs immenses. Une infection compte couramment bactéries. Même avec un taux de mutation de par gène et par division, une mutation donnée est presque certainement déjà présente quelque part dans la population avant tout traitement.
- Des générations très courtes. Une bactérie se divise en vingt minutes dans de bonnes conditions : cinquante générations en une journée, autant que l'espèce humaine en mille cinq cents ans.
- Un transfert horizontal de gènes. Contrairement aux animaux, les bactéries s'échangent des fragments d'ADN entre individus, y compris entre espèces différentes, notamment par de petits anneaux d'ADN appelés plasmides. Un gène de résistance apparu chez une espèce peut ainsi se retrouver chez une autre en quelques jours.
La prophylaxie désigne l'ensemble des mesures visant à empêcher l'apparition ou la propagation d'une maladie : hygiène, isolement, vaccination, traitement préventif.
Une bactérie est dite résistante à un antibiotique lorsqu'elle survit et se multiplie à des concentrations qui tuent les souches ordinaires. La résistance est portée par un ou plusieurs gènes, hérités ou acquis par transfert.
Un variant d'un virus est une lignée qui a accumulé des mutations la distinguant des autres, éventuellement au point de modifier sa transmissibilité, sa virulence ou sa reconnaissance par le système immunitaire.
8.4.2 La résistance aux antibiotiques : un cas d'école
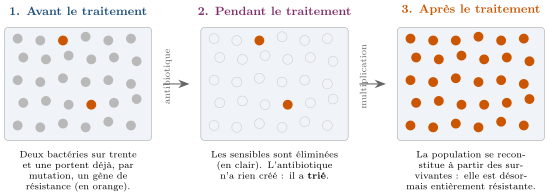
décisif est le premier : les bactéries résistantes existaient avant l'arrivée de l'antibiotique. Celui-ci ne provoque aucune mutation ; il modifie seulement qui survit. C'est le contresens le plus répandu sur ce sujet, et il change entièrement la manière de comprendre le phénomène.</div>
Alexander Fleming découvre la pénicilline en . Dès , avant même qu'elle soit largement employée, Ernst Chain et Edward Abraham décrivent une enzyme bactérienne capable de la détruire. Et dans son discours de réception du prix Nobel, le décembre , Fleming avertit lui-même que l'usage insuffisamment dosé du médicament sélectionnera des souches résistantes. La prédiction précède donc le problème d'une décennie, et elle découle directement du raisonnement darwinien. Une théorie qui prévoit une difficulté avant qu'elle n'apparaisse fait mieux que l'expliquer après coup.
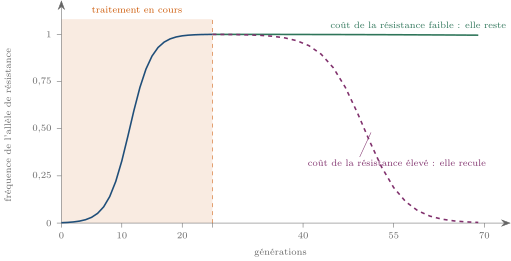
traitement puis après son arrêt. La montée est fulgurante : de deux pour mille à la quasi-totalité en une vingtaine de générations, soit moins d'une journée pour une bactérie. Le retour en arrière, lui, dépend entièrement du cout que la résistance impose en l'absence d'antibiotique — et ce cout est souvent faible. C'est pourquoi arrêter de prescrire ne suffit pas à faire disparaitre une résistance installée.</div>
8.4.3 Adapter les stratégies
Méthode : Mobiliser des concepts évolutionnistes pour expliquer
l'évolution d'une population d'êtres vivants</h4><div class="text-gray-700 leading-relaxed font-sans text-xs select-text"> Ce savoir-faire s'applique aux bactéries comme aux ravageurs des cultures. Six étapes, toujours les mêmes.
- Décrire la population avant : quelle est la variabilité initiale ? Existe-t-il déjà des variants du caractère étudié, et à quelle fréquence ?
- Nommer la pression de sélection et sa nature : antibiotique, insecticide, système immunitaire, changement de milieu. Préciser qui elle élimine et qui elle épargne.
- Écarter explicitement l'explication lamarckienne. La pression ne crée pas le caractère utile ; elle trie des variants préexistants ou apparus indépendamment d'elle. C'est le point que les correcteurs attendent, et c'est aussi le seul qui distingue une compréhension réelle d'une récitation.
- Suivre les fréquences sur plusieurs générations, et lier la vitesse du changement à l'intensité de la sélection, à la taille de la population et à la durée de génération.
- Évoquer le cout du caractère en l'absence de la pression : s'il est élevé, la fréquence rechute quand la pression cesse ; s'il est faible, elle se maintient.
- En déduire une conséquence pratique : c'est ce que le programme appelle « adapter les stratégies ».
Antibiotiques.
La conséquence pratique est double. D'une part réduire la pression de sélection : ne pas prescrire d'antibiotique contre une infection virale — un antibiotique n'a aucun effet sur un virus, mais il sélectionne les bactéries résistantes du patient et de son entourage —, employer l'antibiotique le plus ciblé possible plutôt qu'un antibiotique à large spectre, et réduire drastiquement l'usage en élevage. D'autre part réduire le nombre d'infections à traiter, par l'hygiène, l'isolement des porteurs et la vaccination : chaque infection évitée est une occasion de sélection en moins. L'ordre de grandeur du problème est considérable : une vaste étude publiée en a estimé à environ million le nombre de décès directement attribuables à l'antibiorésistance dans le monde pour la seule année .
Vaccins.
Le virus de la grippe accumule chaque année des mutations dans les protéines de surface reconnues par nos anticorps : c'est la dérive antigénique. Les souches circulantes s'éloignant progressivement de celles du vaccin précédent, la composition du vaccin est révisée chaque année. Le mécanisme est le même que celui de la résistance : le système immunitaire d'une population vaccinée constitue une pression de sélection, et les variants qui y échappent se répandent. La succession des variants du SARS-CoV-2, entre et , en a fourni une illustration observée en temps réel par des centaines de milliers de séquençages.
Prophylaxie.
Toute mesure qui réduit le nombre de transmissions réduit aussi le nombre d'occasions pour un variant d'apparaitre : moins de réplications, moins de mutations. C'est un argument évolutionniste en faveur des mesures d'hygiène, et il ne se déduit pas de la seule médecine clinique.
En , le biologiste Richard Lenski lance une expérience simple : douze populations de la bactérie Escherichia coli, cultivées en parallèle dans un milieu pauvre, transférées chaque jour dans un flacon neuf. Le dispositif n'a rien de spectaculaire ; sa force est la durée. Après plusieurs dizaines de milliers de générations, les douze populations ont toutes amélioré leur croissance, mais par des chemins génétiques différents — et l'une d'elles, une seule, a acquis vers la trente-et-unième millième génération la capacité d'utiliser le citrate du milieu, ce qu'E. coli ne sait normalement pas faire. Deux enseignements. D'abord, l'évolution est reproductible dans ses tendances et imprévisible dans ses détails. Ensuite, une innovation majeure a demandé une accumulation préalable de mutations sans effet visible : l'histoire compte, même au fond d'un flacon.
8.5 L'évolution sous la main de l'humain : l'agriculture
8.5.1 Le savoir
L'évolution des pratiques agricoles a un effet sur la biodiversité et son évolution.
L'agriculture est, depuis dix mille ans, la plus vaste expérience d'évolution jamais conduite. Elle agit de deux manières : par une sélection délibérée, celle des plantes et des animaux que nous cultivons et élevons ; et par une sélection involontaire, celle que nos traitements exercent sur les espèces que nous combattons. Les deux relèvent du même mécanisme, et la seconde nous échappe entièrement.
8.5.2 La domestication : une sélection dont nous fixons le critère
La sélection artificielle est le tri, exercé par l'être humain, des individus autorisés à se reproduire, selon des critères qu'il choisit. Elle ne diffère de la sélection naturelle que par l'origine du critère : ce n'est plus l'environnement qui trie, c'est nous. Le mécanisme — variation héritable, reproduction différentielle, changement des fréquences — est identique.
Le maïs en offre l'exemple le plus spectaculaire. Il descend d'une graminée sauvage mexicaine, la téosinte, dont l'épi porte une dizaine de grains durs, protégés par une enveloppe rigide, et se disloque à maturité pour les disperser. Les agriculteurs ont, sans connaitre la génétique, sélectionné pendant des millénaires les plantes à tige unique, à gros épi non dislocable et à grains nus. Le résultat est un organisme incapable de se reproduire seul : sans intervention humaine, un épi de maïs tombé au sol donne une touffe de plantules qui s'étouffent mutuellement. La domestication a créé une dépendance réciproque.
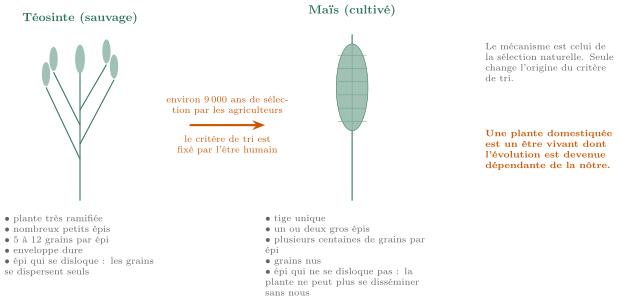
deux plantes, dont l'un commande la ramification de la tige. Les agriculteurs mésoaméricains ont trié pendant des millénaires sans rien savoir de la génétique : le mécanisme fonctionne indépendamment de la compréhension qu'on en a. C'est d'ailleurs en partant de ces éleveurs et sélectionneurs que Darwin construit son argumentation.</div>
Sélectionner, c'est éliminer. Chaque variété moderne descend d'un petit nombre d'individus choisis pour quelques caractères : sa diversité génétique est très inférieure à celle de son ancêtre sauvage. Une monoculture de clones est une population parfaitement uniforme — donc parfaitement vulnérable au premier agent pathogène capable de la contourner. L'histoire agricole en offre plusieurs démonstrations coûteuses, la plus tragique étant la famine irlandaise du milieu du XIXe siècle, où le mildiou s'est répandu dans une population de pommes de terre issue d'une base génétique extrêmement étroite. C'est pour cette raison que sont conservées des banques de semences, dont la plus connue est enfouie dans le pergélisol de l'archipel du Svalbard, ouverte en : elles préservent la variabilité que la sélection élimine.
8.5.3 La sélection involontaire : ravageurs et adventices
Dès qu'un traitement est appliqué à grande échelle, il devient une pression de sélection, et les individus qui y survivent laissent plus de descendants. Le scénario de la résistance aux antibiotiques se rejoue à l'identique, avec des insectes et des plantes à la place des bactéries. Plusieurs centaines d'espèces d'insectes ravageurs sont aujourd'hui résistantes à au moins un insecticide, et plusieurs centaines de cas de résistance d'adventices aux herbicides sont recensés dans le monde ; les premières résistances au glyphosate ont été signalées dès la fin des années .
Le cas des cultures produisant leur propre insecticide est particulièrement instructif. On a introduit dans le maïs et le coton des gènes de la bactérie Bacillus thuringiensis, qui font produire à la plante une toxine létale pour certaines chenilles. La pression de sélection devient alors permanente et appliquée à toute la surface cultivée : les conditions idéales pour sélectionner la résistance. La parade imaginée par les agronomes est purement évolutionniste, et elle mérite d'être comprise en détail.
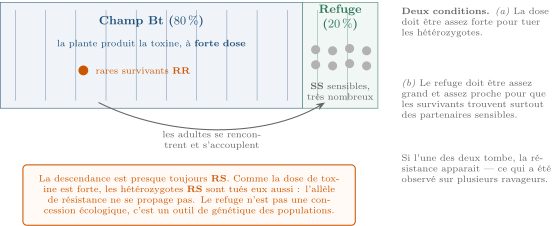
laisser volontairement une part du champ plantée de variétés sans toxine, afin d'y entretenir une population de ravageurs sensibles assez nombreuse pour diluer les rares résistants. Le raisonnement est entièrement fondé sur la génétique des populations, et il illustre la définition même d'une grille de lecture : une théorie sert ici à concevoir une pratique agricole.</div>
L'effet de l'agriculture sur la biodiversité ne se réduit pas à la résistance. L'agrandissement des parcelles et l'arrachage des haies fragmentent les habitats — avec les conséquences génétiques étudiées au chapitre précédent. La simplification des rotations réduit la diversité des ressources disponibles pour les insectes. Les traitements à large spectre atteignent aussi les espèces non visées, dont les pollinisateurs et les auxiliaires de culture, c'est-à-dire les prédateurs naturels des ravageurs : les éliminer revient à supprimer une régulation gratuite. À l'inverse, les pratiques agroécologiques — rotations longues, associations de variétés, bandes fleuries, maintien des haies — cherchent à faire jouer la diversité contre les ravageurs plutôt que de compter sur un seul traitement. Elles reposent, elles aussi, sur un raisonnement évolutionniste : une pression uniforme sélectionne vite, une mosaïque de pressions sélectionne mal.
8.6 La grille au-delà de la biologie
Ce qui suit ne figure pas dans les savoirs exigibles du programme. C'est une ouverture, et elle a une raison d'être : le mécanisme darwinien n'est pas une loi de la biologie, c'est un schéma logique. Partout où l'on trouve réunies de la variation, une transmission et un tri, on doit s'attendre à observer une évolution — que les objets soient vivants ou non. Reconnaitre ce schéma ailleurs, et savoir dire où l'analogie cesse d'être valide, est exactement ce qu'on appelle une grille de lecture.
8.6.1 Les algorithmes évolutionnaires
Comment concevoir un objet quand on sait dire si une solution est bonne, mais pas comment la trouver ? Une réponse, mise au point dans les années et indépendamment en Allemagne et aux États-Unis, consiste à imiter le mécanisme darwinien. On engendre au hasard une population de solutions candidates ; on les évalue ; on garde les meilleures ; on les recombine et on les modifie légèrement ; on recommence. Après quelques milliers de cycles, les solutions obtenues sont souvent excellentes — et parfois si étranges qu'aucun ingénieur ne les aurait dessinées. L'agence spatiale américaine a ainsi employé en , sur une mission de petits satellites, une antenne conçue de cette manière : une forme tordue, asymétrique, difficile à justifier autrement que par sa performance mesurée.
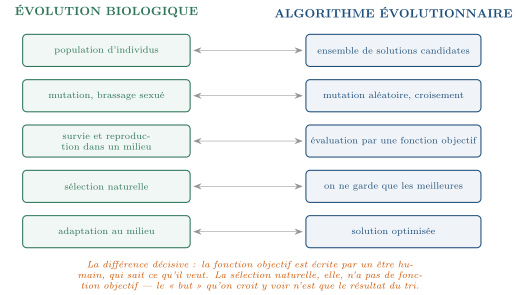
un algorithme évolutionnaire. La transposition fonctionne parce que le mécanisme darwinien ne suppose rien de vivant : il suffit qu'il y ait variation, transmission et tri. La dernière ligne rappelle l'endroit précis où l'analogie s'arrête.</div>
8.6.2 Les langues et les techniques
Les langues varient, se transmettent d'une génération à l'autre, et certaines formes se répandent tandis que d'autres disparaissent. On y retrouve les trois ingrédients, et les linguistes construisent d'ailleurs des arbres de parenté entre langues avec des méthodes empruntées à la phylogénie. Les techniques suivent le même schéma : les objets se copient avec des variations, et ceux qui sont copiés davantage se répandent.
Mais l'analogie a des limites nettes, et c'est en les énonçant qu'on montre qu'on l'a comprise.
- La transmission n'est pas seulement verticale. On apprend des mots de ses parents, mais aussi de ses camarades, de la télévision, d'une langue étrangère. En biologie, ce mode de transfert existe chez les bactéries ; il est marginal chez les animaux, alors qu'il est dominant dans la culture.
- Les variations peuvent être dirigées. Un ingénieur modifie un objet dans le but de l'améliorer. Une mutation n'a jamais de but. C'est la différence la plus profonde, et elle rend l'évolution culturelle bien plus rapide.
- Les caractères acquis se transmettent. Ce que j'apprends au cours de ma vie, je peux l'enseigner. En biologie, ce mécanisme — que Lamarck avait supposé — ne fonctionne pas pour l'essentiel des caractères.
Étendre un modèle hors de son domaine d'origine est fécond et dangereux. Fécond, parce que le schéma darwinien a réellement produit des algorithmes efficaces et des méthodes de linguistique historique. Dangereux, parce que la même extension a servi, au XIXe et au XXe siècle, à justifier des inégalités sociales, des politiques coloniales et l'eugénisme, sous le nom de « darwinisme social ». La faute logique était double : appliquer aux sociétés un modèle valide pour les populations biologiques sans vérifier ses conditions de validité, et passer d'un constat à une prescription. C'est pourquoi la question « où l'analogie s'arrête-t-elle ? » n'est pas une précaution de style : c'est la partie sérieuse du travail.
8.7 Histoire des sciences : la construction d'une grille
— Lamarck ose la transformation. Jean-Baptiste de Lamarck publie la Philosophie zoologique et propose la première théorie complète de la transformation des espèces. Son mécanisme — l'usage et le non-usage des organes, et la transmission des caractères acquis — s'est révélé faux ; sa thèse centrale — les espèces se transforment — était juste, et elle rompait avec la fixité admise depuis toujours. On oublie trop souvent qu'avoir posé la bonne question est déjà un apport considérable.
- — Darwin et Wallace. Charles Darwin travaille depuis vingt ans sans publier lorsqu'il reçoit d'Alfred Russel Wallace, alors en Indonésie, un manuscrit exposant la même idée. Les deux textes sont présentés ensemble à la Linnean Society de Londres le juillet . Darwin publie L'Origine des espèces le novembre . Il y consacre d'ailleurs son premier chapitre non pas à la nature sauvage mais aux éleveurs de pigeons : c'est de la sélection artificielle, familière à ses lecteurs, qu'il part pour rendre plausible la sélection naturelle.
- — Mendel, oublié puis retrouvé. Gregor Mendel établit les lois de la transmission des caractères. Son travail passe inaperçu pendant trente-quatre ans. Redécouvert en , il fournit à la théorie de Darwin ce qui lui manquait cruellement : un mécanisme d'hérédité qui ne dilue pas les variations. Sans lui, la sélection naturelle restait fragile.
- — La théorie synthétique. Mathématiciens, généticiens, naturalistes et paléontologues réunissent la génétique mendélienne, la génétique des populations et l'observation du terrain. Ronald Fisher, John Haldane et Sewall Wright montrent que sélection et hérédité particulaire sont non seulement compatibles, mais qu'elles s'appellent l'une l'autre. C'est une des grandes unifications de l'histoire des sciences, comparable à celle que Maxwell avait réalisée entre électricité et magnétisme.
— Une phrase et un programme. Theodosius Dobzhansky publie un article intitulé « Rien en biologie n'a de sens, sinon à la lumière de l'évolution ». Le titre est devenu une formule ; le propos était pédagogique : il s'adressait à des professeurs de biologie et défendait l'idée que l'évolution n'est pas un chapitre de la biologie, mais son fil directeur.
— L'évolution devient une expérience. Richard Lenski met douze populations d'Escherichia coli en culture continue. L'évolution cesse d'être seulement une reconstitution du passé pour devenir une science expérimentale, avec des répétitions, des témoins et des prédictions vérifiables.
— Un vieil exemple enfin élucidé. La phalène du bouleau est l'exemple d'école : une forme sombre de ce papillon, observée pour la première fois près de Manchester au milieu du XIXe siècle, s'est répandue dans les régions industrielles où la suie noircissait les troncs, avant de régresser après les lois sur la qualité de l'air. Les expériences des années qui l'avaient documentée ont été critiquées pour leur protocole, et l'exemple a été contesté — puis reconfirmé par des travaux plus rigoureux. En , une équipe a identifié la mutation responsable : l'insertion d'un élément mobile dans un gène, datée des toutes premières années du XIXe siècle, soit quelques décennies avant la première observation. Leçon : un exemple d'école peut être critiqué, corrigé, et finalement mieux établi qu'auparavant. C'est ainsi que la science progresse — pas en ayant raison du premier coup.
8.8 Bilan
Ce qu'il faut savoir
- Les structures anatomiques présentent des particularités surprenantes, apparemment sans fonction ou d'une étonnante complexité. Elles témoignent de l'évolution des espèces, dont la nôtre.
- Un caractère anatomique peut résulter de la sélection naturelle, mais certains sont mieux expliqués par l'héritage de l'histoire évolutive que par leur fonction : contraintes de construction, compromis, régressions, contingences.
- L'évolution éclaire des phénomènes biologiques d'importance médicale. L'évolution rapide des micro-organismes — effectifs immenses, générations courtes, transferts horizontaux de gènes — oblige à adapter les stratégies prophylactiques, les vaccins et les antibiotiques.
- L'évolution des pratiques agricoles a un effet sur la biodiversité et son évolution : domestication et sélection artificielle d'un côté, sélection involontaire de ravageurs et d'adventices résistants de l'autre, fragmentation et uniformisation des milieux enfin.
Ce qu'il faut savoir faire
- Expliquer l'origine d'une structure anatomique en mobilisant les concepts de hasard, de variation, de sélection naturelle et d'adaptation — et savoir conclure, le cas échéant, à une explication historique plutôt que fonctionnelle.
- Mobiliser des concepts évolutionnistes pour expliquer l'évolution d'une population d'êtres vivants : décrire la variation initiale, nommer la pression de sélection, écarter explicitement l'explication lamarckienne, suivre les fréquences, discuter le cout du caractère, en tirer une conséquence pratique.
Trois phrases à ne jamais écrire
« L'organisme a muté pour s'adapter » — une mutation n'a pas de but. « L'espèce X est plus évoluée que l'espèce Y » — toutes les lignées actuelles ont le même âge. « Ce caractère existe, donc il sert » — l'existence n'est pas une preuve de fonction.
Ce que ce chapitre dit de la science elle-même
Il montre d'abord la puissance d'une explication qui ne fait appel à aucune intention. Le mécanisme darwinien tient en trois prémisses, et il rend compte d'objets aussi divers qu'un détour nerveux chez la girafe, la résistance d'une bactérie découverte en quelques heures, et la forme d'un épi de maïs. Peu de théories couvrent un tel domaine avec si peu d'hypothèses.
Il montre ensuite qu'une bonne théorie prédit des difficultés. Fleming a annoncé la résistance aux antibiotiques avant qu'elle ne soit un problème, parce que la sélection naturelle la rendait inévitable. Les agronomes ont conçu la stratégie du refuge à partir d'un raisonnement de génétique des populations, avant d'y être contraints par les faits. Une théorie qui ne sert qu'à expliquer après coup est une théorie faible ; celle-ci sert à anticiper.
Il montre enfin qu'une grille de lecture doit venir avec ses limites. L'évolution éclaire l'anatomie, la médecine, l'agriculture, et jusqu'à des algorithmes d'optimisation. Mais dès qu'on la transporte vers les sociétés humaines, deux fautes guettent : oublier de vérifier que ses conditions d'application sont réunies, et glisser du constat à la prescription. Savoir où un outil cesse de valoir fait partie de la maitrise de cet outil — et c'est peut-être, au bout du compte, ce que cet enseignement scientifique aura de plus utile à vous laisser.