L'évolution humaine
Cours · enseignement scientifique (terminale), chapitre 9 · terminale, enseignement scientifique · le début du chapitre, la suite sur Adloun
9.1 Introduction : d'où venons-nous, et comment le sait-on ?
Il existe aujourd'hui, sur Terre, une seule espèce humaine. Ce fait nous paraît si naturel que nous ne le remarquons plus. Il est pourtant récent, et exceptionnel. Il y a ans — hier, à l'échelle de l'évolution — au moins quatre formes humaines vivaient en même temps sur la planète : des Homo sapiens en Afrique et au Proche-Orient, des Néandertaliens en Europe et en Asie occidentale, des Dénisoviens en Asie, et sur l'île indonésienne de Flores une population de très petite taille, Homo floresiensis. Nous sommes les survivants d'un groupe qui a été, pendant des millions d'années, beaucoup plus divers qu'il ne l'est aujourd'hui.
Ce chapitre pose donc deux questions, et la seconde est la plus importante. Que sait-on de l'histoire évolutive de l'espèce humaine ? Et surtout : comment le sait-on, et avec quel degré de certitude ?
Car ce domaine a une particularité. Les archives y sont rares : quelques milliers de fragments osseux répartis sur sept millions d'années, souvent une dent, un morceau de mâchoire, rarement un squelette. Chaque découverte peut donc modifier le tableau, et le tableau a effectivement beaucoup changé — trois fois en profondeur depuis . Un livre de sciences qui prétendrait donner ici un récit définitif mentirait. En revanche, il peut faire quelque chose de plus utile : distinguer soigneusement ce qui est solidement établi, ce qui est probable, et ce qui est ouvertement débattu. C'est ce que nous ferons, phrase après phrase.
Trois fils courent dans le chapitre.
- Classer. Où l'espèce humaine se range-t-elle dans le vivant ? La réponse ne s'obtient pas en comparant des ressemblances globales, mais en cherchant des innovations partagées. Nous construirons un arbre à partir d'une matrice de caractères, puis nous vérifierons le résultat avec les génomes.
- Dater. Les fossiles de à millions d'années portent les premières innovations de notre groupe. Nous apprendrons à les reconnaître sur un os, et à situer un fossile dans un arbre.
- Se méfier de nos images. Le récit de nos origines a été, plus qu'aucun autre, déformé par ce que l'on souhaitait y trouver. La célèbre « marche du progrès », les théories abandonnées, la fraude de Piltdown : ces épisodes ne sont pas des anecdotes, ce sont des leçons de méthode.
Ce chapitre n'emploiera jamais le mot « race » à propos de l'espèce humaine. Ce n'est pas une pudeur : c'est une exigence scientifique. Aucune subdivision de l'espèce Homo sapiens ne correspond à une réalité biologique — nous verrons pourquoi, chiffres à l'appui, à la fin du chapitre.
Il n'emploiera pas davantage un vocabulaire de hiérarchie ou de progrès : ni « espèce supérieure », ni « stade primitif », ni « évolué ». Une espèce n'est pas plus avancée qu'une autre ; elle est adaptée, ou non, à un milieu donné, à un moment donné. Le mot juste pour un caractère apparu tardivement dans un groupe est dérivé, et son contraire est ancestral — deux termes descriptifs, sans jugement.
9.2 Une espèce parmi les primates
9.2.1 Ce que « être apparenté » veut dire
Dans le langage courant, on dit que deux êtres se ressemblent. En biologie de l'évolution, la ressemblance ne suffit pas : un dauphin ressemble beaucoup plus à un requin qu'à une chauve-souris, et pourtant il est bien plus proche parent de la chauve-souris. Pour établir une parenté, il faut un critère plus fin.
Un caractère est un trait observable : la présence d'une queue, le nombre de dents, la forme d'un os. Chaque caractère existe sous plusieurs états. Un état est dit ancestral lorsqu'il était déjà celui de l'ancêtre du groupe étudié ; il est dit dérivé lorsqu'il constitue une innovation, apparue dans une partie du groupe seulement.
Deux espèces sont d'autant plus proches parentes qu'elles partagent davantage d'états dérivés. Un ensemble d'espèces qui partagent une innovation héritée d'un même ancêtre forme un groupe emboîté. L'ancêtre commun de deux espèces est l'espèce, généralement inconnue, dont elles descendent toutes les deux : ce n'est jamais l'une des deux.
Parce qu'un caractère ancestral ne renseigne sur rien. Le lémurien, le macaque et l'être humain ont tous les quatre membres : ce trait remonte à un ancêtre vieux de millions d'années, commun à presque tous les vertébrés terrestres. Il ne dit rien de leurs parentés respectives. En revanche, l'absence de queue est une nouveauté : elle ne concerne qu'une petite fraction des primates, et le fait de la partager est une information.
9.2.2 Le premier savoir : nous sommes des primates
L'espèce humaine actuelle (Homo sapiens) fait partie du groupe des primates et est plus particulièrement apparentée aux grands singes, avec lesquels elle partage des caractères morpho-anatomiques, des comportements et des similitudes génétiques. C'est avec le chimpanzé qu'elle partage le plus récent ancêtre commun.
Trois familles d'arguments convergent donc : l'anatomie, le comportement et la génétique. Aucune n'est décisive à elle seule ; c'est leur accord qui fait la solidité du résultat.
Les caractères morpho-anatomiques.
L'espèce humaine possède tous les caractères qui définissent les primates : des ongles plats au lieu de griffes, un pouce opposable, des yeux frontaux dont les champs de vision se recouvrent (vision en relief), une clavicule, un cerveau volumineux relativement à la masse du corps. Elle possède en outre les caractères des hominoïdes, ce petit groupe qui rassemble les gibbons, l'orang-outan, le gorille, le chimpanzé, le bonobo et nous : absence de queue, thorax aplati d'avant en arrière, épaule permettant une grande amplitude de rotation, appendice vermiforme.
Les comportements.
Les grands singes fabriquent et utilisent des outils : les chimpanzés de Taï, en Côte d'Ivoire, cassent des noix entre une enclume et un percuteur de pierre, ceux de Gombe, en Tanzanie, pêchent les termites avec une brindille effeuillée — un comportement observé et publié par Jane Goodall à partir de . Ils entretiennent des relations sociales durables, se reconnaissent dans un miroir, se transmettent des techniques d'un groupe à l'autre. Aucun de ces traits n'est propre à l'espèce humaine.
Les similitudes génétiques.
Le séquençage des génomes a permis de chiffrer les ressemblances. Nous y venons dans un instant, car ce sont elles qui tranchent la dernière question — celle du plus proche parent.
9.2.3 Savoir-faire : construire un arbre à partir d'une matrice
Voici une matrice de comparaison portant sur six espèces actuelles et cinq caractères. La case porte si l'espèce présente l'état dérivé du caractère, et si elle présente l'état ancestral.
| Espèce | C1 | C2 | C3 | C4 | C5 |
|---|---|---|---|---|---|
| Lémur catta | 1 | 0 | 0 | 0 | 0 |
| Macaque rhésus | 1 | 1 | 0 | 0 | 0 |
| Orang-outan | 1 | 1 | 1 | 0 | 0 |
| Gorille | 1 | 1 | 1 | 1 | 0 |
| Chimpanzé | 1 | 1 | 1 | 1 | 0 |
| Homo sapiens | 1 | 1 | 1 | 1 | 1 |
C1 : ongles plats et pouce opposable. C2 : dents (formule dentaire ---). C3 : absence de queue. C4 : présence de sinus frontaux. C5 : bipédie permanente et trou occipital central.
Méthode : Analyser une matrice de caractères et construire un arbre phylogénétique
- Vérifier que les états comparés sont bien homologues, c'est-à-dire qu'ils désignent la même structure chez toutes les espèces. Comparer « aile de l'oiseau » et « aile de l'insecte » n'a aucun sens.
- Repérer, pour chaque caractère, quel état est dérivé. On le détermine grâce à un groupe extérieur : une espèce sûrement plus éloignée que toutes celles de la matrice. L'état qu'elle présente est l'ancestral.
- Compter, pour chaque caractère, combien d'espèces portent l'état dérivé, et ranger les caractères du plus partagé au moins partagé. Ici : C1 (), C2 (), C3 (), C4 (), C5 ().
- Écrire les groupes emboîtés. Chaque caractère dérivé définit un groupe ; ces groupes doivent s'emboîter les uns dans les autres comme des poupées russes. Si deux groupes se chevauchent sans s'emboîter, c'est qu'une innovation est apparue deux fois indépendamment, ou qu'un état a été perdu : le signaler plutôt que de forcer l'arbre.
- Tracer l'arbre : chaque nœud est un ancêtre commun hypothétique, chaque innovation se place sur la branche qui mène au groupe qu'elle définit.
- Lire l'arbre correctement : ce sont les nœuds qui portent l'information, pas l'ordre des espèces en bout de branche. Faire pivoter une branche autour de son nœud ne change rien à l'arbre.
Tableaux croisés, organisation de données : une matrice de caractères est un tableau à double entrée, et le raisonnement consiste à comparer des lignes.
C1 est partagé par les six espèces : il définit le groupe entier, les primates, et ne distingue donc rien à l'intérieur. C2 exclut le lémur : il définit le groupe \{macaque, orang-outan, gorille, chimpanzé, humain\}. C3 exclut en plus le macaque, C4 en plus l'orang-outan. C5 n'est porté que par une espèce. Les groupes s'emboîtent parfaitement : la matrice est cohérente.
Elle laisse toutefois une question ouverte. Aucun caractère ne sépare le gorille, le chimpanzé et l'humain les uns des autres : leurs trois lignes sont identiques sauf en C5. La morphologie, ici, ne tranche pas. Il faudra d'autres données.
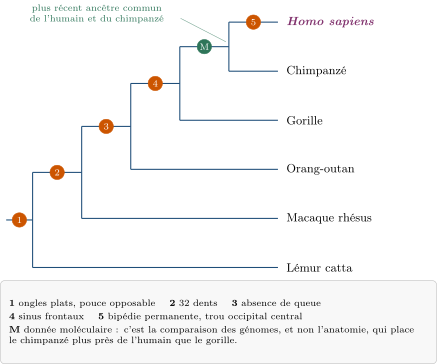
caractères. Chaque pastille orange marque une innovation évolutive, placée sur la branche du groupe qu'elle définit. La pastille verte rappelle que le dernier nœud n'est pas résolu par l'anatomie seule : ce sont les génomes qui l'ont
tranché.Un arbre phylogénétique n'a pas de sommet. Sur la figure ci-dessus, Homo sapiens est en haut parce qu'il fallait bien le mettre quelque part : on peut faire pivoter chaque nœud sans changer une seule relation de parenté. En particulier, l'arbre ne dit pas que le lémurien serait « moins évolué ». Le lémurien et l'être humain sont séparés du même nombre d'années de leur ancêtre commun : chacun a évolué exactement aussi longtemps que l'autre, simplement dans une autre direction.
9.2.4 Savoir-faire : ce que les génomes ajoutent
Les grands génomes de primates ont été publiés en une quinzaine d'années : celui de l'être humain (première version en , séquence achevée en ), celui du chimpanzé en , celui de l'orang-outan en , celui du gorille en . On peut donc les comparer directement.
Méthode : Mettre en relation ressemblance génétique et degré de parenté
- Lire ce qui a été comparé. « d'identité » ne veut rien dire sans préciser : identité entre quoi et quoi ? sur quelles régions ? en comptant quoi ? Le chiffre de porte sur les substitutions d'une seule base dans les portions de génome que l'on peut aligner. Si l'on tient compte aussi des morceaux d'ADN insérés ou perdus, l'écart monte à quelques pour cent.
- Classer les espèces par pourcentage décroissant d'identité.
- Vérifier que ce classement est le même que celui de l'arbre construit sur l'anatomie. S'il l'est, les deux jeux de données se confirment mutuellement : c'est le résultat le plus solide qu'on puisse obtenir.
- Conclure sur le plus proche parent, en formulant la conclusion correctement : « l'espèce dont le génome diffère le moins du nôtre est celle avec laquelle nous partageons le plus récent ancêtre commun ».
- Ne jamais conclure qu'une espèce descend d'une autre. Le chimpanzé n'est pas notre ancêtre : c'est un cousin, dont la lignée a évolué pendant exactement le même temps que la nôtre depuis notre séparation.
Pourcentages, lectures graphiques, proportionnalité.
| Espèce comparée à l'humain | Identité de séquence | Séparation estimée |
|---|---|---|
| Chimpanzé, bonobo | à millions d'années | |
| Gorille | à millions d'années | |
| Orang-outan | à millions d'années | |
| Macaque rhésus | à millions d'années |
Ordres de grandeur, arrondis, calculés sur les régions alignables des génomes. Les valeurs publiées varient de quelques dixièmes selon les régions retenues et la méthode d'alignement ; les dates de séparation sont des estimations, assorties d'incertitudes réelles.
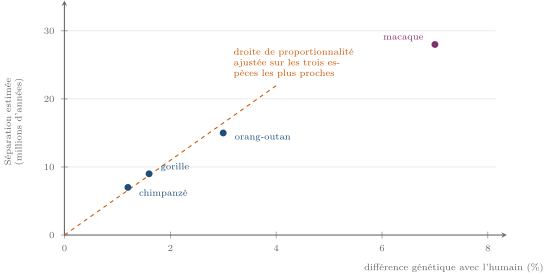
génomes ont accumulé de différences. La relation est presque proportionnelle entre espèces proches — c'est le principe de l'horloge moléculaire. Le macaque tombe nettement sous la droite : l'horloge n'est pas parfaitement régulière, et elle ralentit apparemment quand on remonte loin, ce qui oblige à la recalibrer
sur des fossiles datés.Le génome humain compte environ milliards de paires de bases. Une différence de représente donc de l'ordre de millions de positions différentes : le pourcentage est rassurant, le nombre absolu ne l'est pas. Retenez surtout ceci : un pourcentage d'identité élevé ne signifie pas que les organismes se ressemblent, il signifie que la séparation est récente. La souris et l'être humain partagent l'immense majorité de leurs gènes, ce qui n'a jamais fait d'une souris un petit humain. Ce sont les différences de régulation — quel gène s'exprime, où, quand, combien de temps — qui font l'essentiel de l'écart entre deux espèces proches.
« L'être humain descend du singe » est une phrase fausse, pour deux raisons. D'abord, l'être humain est un singe, au sens où il possède tous les caractères du groupe : il n'en est pas sorti. Ensuite, il ne descend d'aucune espèce actuelle. Le chimpanzé n'est pas une étape antérieure sur un chemin qui mènerait à nous ; c'est une espèce contemporaine, issue comme nous d'un ancêtre commun disparu, et qui n'était ni un humain ni un chimpanzé. Cet ancêtre a vécu, selon les estimations actuelles, il y a à millions d'années. On n'en a très probablement aucun fossile.