Une structure complexe : la cellule vivante
Cours complet · enseignement scientifique (première), chapitre 3 · première, enseignement scientifique
Travailler ce chapitre sur Adloun Exercices corrigés de ce chapitre
3.1 Introduction : qu'est-ce qui sépare le vivant du non-vivant ?
Posez côte à côte un cristal de sel et une bactérie. Les deux sont faits des mêmes éléments chimiques — le chapitre précédent l'a montré, et le premier chapitre plus encore : il n'existe pas d'atome « vivant ». Les deux sont ordonnés. Les deux ont une forme définie. Et pourtant l'un est du sel et l'autre est vivant. Où passe exactement la frontière ?
La réponse n'est pas dans la matière, elle est dans l'organisation. Un cristal se répète : connaissant une maille, on les connaît toutes. Une cellule ne se répète pas : elle contient des milliers de molécules différentes, réparties en compartiments spécialisés, et surtout elle ne cesse de transformer ce qu'elle contient. Un cristal est une architecture ; une cellule est un chantier. Le cristal est stable parce qu'il ne fait rien. La cellule tient debout parce qu'elle travaille, en permanence, et parce qu'elle échange sans arrêt avec le monde extérieur. Coupez ces échanges, elle meurt.
Ce chapitre s'organise autour de trois questions.
- Comment l'a-t-on su ? La cellule n'est pas une évidence : c'est une découverte, et elle a été suspendue à un instrument. Sans microscope, pas de cellule ; sans microscope électronique, pas d'organites. L'histoire de cette découverte est le meilleur exemple, dans tout le programme, de la façon dont un concept naît d'une technique.
- De quelle taille parle-t-on ? Entre l'atome et l'organisme, il y a dix puissances de dix. Se tromper d'échelle, c'est ne rien comprendre : une confusion d'un facteur mille est ici la règle chez qui débute.
- Qu'est-ce qu'une cellule fait ? Elle est un milieu aqueux, séparé de l'extérieur par une membrane, qui a besoin d'énergie et qui échange en permanence. Cette phrase contient tout le reste du chapitre — y compris la question, étrangement difficile, de savoir si un virus est vivant.
Vous verrez ici de la biologie, bien sûr, mais aussi de la chimie (la molécule de phospholipide et son comportement dans l'eau), de la physique (la diffusion, la limite de résolution d'un instrument) et des mathématiques (échelles, proportionnalité, puissances de dix). Comme au chapitre précédent, le symbole signale les renvois vers la partie mathématique du livre.
3.2 Voir l'invisible : l'instrument avant le concept
3.2.1 : Hooke nomme une chose qu'il ne comprend pas
En , le savant anglais Robert Hooke publie Micrographia, un recueil d'observations faites au microscope composé qu'il a lui-même perfectionné. Il y examine une fine tranche de liège et y découvre un réseau de petites logettes vides séparées par des cloisons. Il les compare aux cellules d'un monastère et les nomme cells.
L'épisode mérite qu'on s'y arrête. Hooke n'a pas découvert la cellule vivante : le liège est un tissu mort, et ce qu'il voit sont des parois vides. Il n'imagine pas un instant que ces logettes soient l'unité de tous les êtres vivants. Il a seulement donné un nom à une régularité. Ce nom, pourtant, va rester — et ce sont des générations d'observateurs qui, lentement, vont lui donner un sens.
Les microscopes composés du XVIIe siècle souffraient d'aberrations si fortes que le grossissement utile dépassait rarement quelques dizaines de fois. Hooke pouvait distinguer des parois de liège, épaisses de plusieurs micromètres ; il ne pouvait voir ni noyau, ni membrane, ni organite. La limite de l'instrument fixait donc la limite du concept : on ne pouvait pas penser la cellule comme un contenu tant qu'on n'en voyait que le contenant.
3.2.2 Deux siècles pour passer de l'observation à la théorie
La découverte de l'unité cellulaire est liée à l'invention du microscope. L'observation de structures semblables dans de très nombreux organismes a conduit à énoncer le concept général de cellule et à construire la théorie cellulaire.
Deux choses, donc, et dans cet ordre : d'abord un instrument, ensuite une généralisation. Ce n'est pas une observation isolée qui fonde le concept, mais la répétition d'une même observation sur des matériaux extrêmement divers — plantes, animaux, tissus mous et durs. Ce passage de « j'ai vu ceci ici » à « il en est ainsi partout » est l'un des gestes fondamentaux de la démarche scientifique, et l'un des plus risqués.
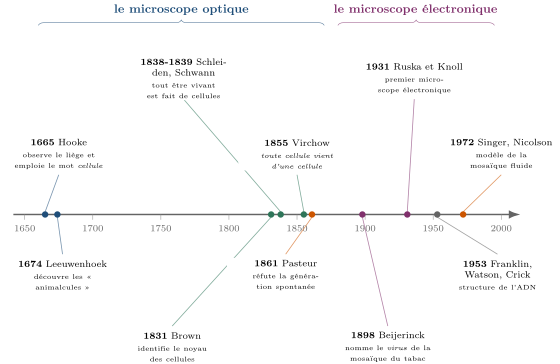
conceptuel — le concept de cellule, la théorie cellulaire, l'exploration de l'intérieur de la cellule — suit de peu un progrès technique. La science n'avance pas seulement par de nouvelles idées : elle avance aussi par de nouveaux yeux.</div>
— Leeuwenhoek voit bouger.
Antonie van Leeuwenhoek, drapier de Delft, n'est ni universitaire ni médecin. Il polit lui-même de minuscules lentilles sphériques et construit des microscopes simples, à une seule lentille, qui atteignent des grossissements de l'ordre de deux cents fois — bien supérieurs à ceux de Hooke. Dans une goutte d'eau de mare, il découvre un monde grouillant qu'il appelle animalcules. En , il observe, dans le tartre de ses propres dents, ce que nous appelons aujourd'hui des bactéries. Il communique tout cela à la Royal Society de Londres, dans des lettres en néerlandais, sans jamais publier de traité. On lui demande de recommencer devant témoins : il le fait. La science exige la reproductibilité, et elle l'exige d'autant plus fermement que le résultat est extraordinaire.
— Brown voit le noyau.
Le botaniste écossais Robert Brown, en examinant des cellules d'orchidées, remarque dans chacune un corpuscule constant, qu'il nomme nucleus, le noyau. Pour la première fois, la cellule n'est plus une case vide : elle a un contenu structuré.
- — Schleiden et Schwann généralisent.
Matthias Schleiden montre en que tous les tissus végétaux sont formés de cellules. L'année suivante, Theodor Schwann, physiologiste, étend la conclusion aux animaux, y compris à des tissus où l'organisation cellulaire n'est pas évidente, comme le cartilage ou l'os. La théorie cellulaire est née : tout être vivant est constitué d'une ou plusieurs cellules. C'est une unification comparable, dans son ambition, à celle que Newton avait opérée entre la chute des corps et le mouvement des planètes.
— Virchow ferme le cercle.
Reste une question : d'où vient une cellule ? Schwann pensait encore qu'elles pouvaient se former par cristallisation à partir d'un fluide. Rudolf Virchow tranche par une formule restée célèbre : omnis cellula e cellula, « toute cellule provient d'une cellule ». La théorie cellulaire prend alors sa forme définitive et devient aussi une théorie de la filiation : il n'y a pas de commencement spontané.
— Pasteur enterre la génération spontanée.
L'affirmation de Virchow demandait une preuve expérimentale. Louis Pasteur la fournit avec ses ballons à col de cygne : un bouillon nutritif bouilli puis laissé au contact de l'air, mais dont le col recourbé retient les poussières, ne se trouble pas — pendant des mois. Cassez le col, et il se trouble en quelques heures. La conclusion est nette : les micro-organismes ne naissent pas du bouillon, ils viennent de l'air. L'expérience est un modèle du genre, parce qu'elle ne supprime pas seulement une hypothèse : elle isole un seul facteur, le contact avec les poussières, tout le reste étant identique.
3.2.3 Le microscope électronique ouvre l'intérieur
Plus récemment, l'invention du microscope électronique a permis l'exploration de l'intérieur de la cellule et la compréhension du lien entre échelle moléculaire et cellulaire.
Le microscope optique bute sur une limite qui n'est pas un défaut de fabrication : c'est une loi physique. Deux points plus rapprochés qu'environ la moitié de la longueur d'onde de la lumière utilisée ne peuvent pas être distingués, quelle que soit la qualité des lentilles. Avec de la lumière visible, cela fixe la limite vers micromètre. Aucune amélioration du verre n'y changera rien.
En , Ernst Ruska et Max Knoll construisent le premier microscope électronique : au lieu de lumière, il utilise un faisceau d'électrons, dont la « longueur d'onde » associée est des milliers de fois plus courte. Dès l'instrument dépasse le microscope optique ; il atteindra le dixième de nanomètre, c'est-à-dire la taille d'un atome. Ruska recevra le prix Nobel de physique en , cinquante-cinq ans après son invention.
Ce que l'on découvre alors change tout. La cellule n'est pas un sac homogène : elle est compartimentée en organites, chacun spécialisé. Et surtout, on peut enfin relier ce que l'on voit — une membrane de huit nanomètres d'épaisseur — à ce que la chimie décrit — une double couche de molécules de lipides. L'échelle cellulaire et l'échelle moléculaire se rejoignent.
Méthode : Analyser et interpréter un document historique
Un texte, une planche gravée, une lettre : ces documents sont des sources, et ils se lisent avec méthode.
- Dater et situer. Qui écrit, quand, pour qui ? Une lettre privée à la Royal Society, un traité imprimé et un manuel scolaire n'ont ni le même statut ni le même public.
- Identifier l'instrument et ses limites. Quel grossissement ? Quelle préparation ? Ce que l'auteur ne pouvait pas voir explique souvent ce qu'il n'a pas compris. Reprocher à Hooke de n'avoir pas vu le noyau serait un anachronisme.
- Séparer l'observation de l'interprétation. « J'ai vu des logettes » est une observation ; « ce sont les briques du vivant » est une interprétation, et elle n'est pas de Hooke. Cette distinction est la clef de l'exercice.
- Chercher ce qui est généralisé, et sur quoi. La force de Schwann n'est pas d'avoir observé mieux que les autres, c'est d'avoir observé sur des tissus très différents. L'étendue de l'échantillon fait la solidité de la généralisation.
- Repérer les résistances et les controverses. Une idée qui s'impose sans discussion est rare. Qui s'opposait ? Avec quels arguments ? La génération spontanée n'était pas une sottise : c'était une hypothèse raisonnable, que seule une expérience bien conçue a pu écarter.
- Conclure sur l'apport propre du document, en une phrase, sans réécrire l'histoire à l'envers.
Schwann, : « il y a un principe de développement commun aux parties les plus diverses des organismes, et ce principe est la formation des cellules ». Virchow, : omnis cellula e cellula. La première phrase énonce une unité de structure ; la seconde ajoute une continuité de filiation. La différence n'est pas de style : Schwann admettait encore une formation de cellules à partir d'un liquide informe, ce que Virchow exclut. Seize ans séparent les deux propositions, et c'est le temps qu'il a fallu pour achever la théorie.
3.3 Les échelles du vivant
3.3.1 Dix puissances de dix
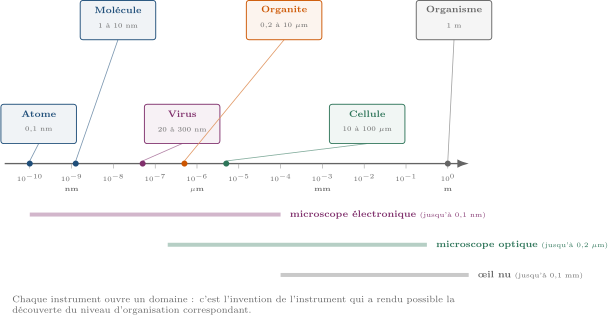
instrument permet d'atteindre. Les zones se recouvrent : le microscope optique voit la cellule et les plus gros organites, mais pas les virus ni les molécules. C'est exactement la raison pour laquelle les virus sont restés invisibles jusqu'en .</div>
Méthode : Situer les ordres de grandeur : atome, molécule, organite,
cellule, organisme</h4><div class="text-gray-700 leading-relaxed font-sans text-xs select-text"> Retenir un repère par niveau, et raisonner ensuite par facteurs de dix.
| Niveau | Ordre de grandeur | Exemple |
|---|---|---|
| Atome | nm m | carbone, oxygène |
| Petite molécule | à nm | eau, glucose |
| Grosse molécule | à nm | une protéine, l'ADN (diamètre nm) |
| Membrane (épaisseur) | nm | la membrane plasmique |
| Virus | à nm | grippe, vih |
| Ribosome | nm | --- |
| Organite | à m | mitochondrie, noyau, chloroplaste |
| Bactérie | à m | Escherichia coli |
| Cellule eucaryote | à m | cellule de la peau, de l'oignon |
| Organisme | à m | un ciron, un être humain, un séquoia |
Deux réflexes. Toujours convertir en écriture scientifique avant de comparer ( m m ; nm m). Et toujours exprimer le résultat comme un rapport : « la cellule est mille fois plus grande que la bactérie » est plus parlant que deux nombres côte à côte.
Échelle, proportionnalité : voir la partie mathématique du livre, et l'annexe « Automatismes » pour les puissances de dix.
Méthode : Relier l'échelle de la cellule, de ses organites et des
molécules qui la constituent</h4><div class="text-gray-700 leading-relaxed font-sans text-xs select-text"> La question n'est pas seulement « qui est plus grand ? », mais « combien en tient-il dans l'autre ? ». Procéder ainsi.
- Écrire les deux tailles dans la même unité, en écriture scientifique.
- Faire le quotient : c'est le rapport linéaire.
- Élever au carré ou au cube si l'on compare des aires ou des volumes. C'est ici que se logent presque toutes les erreurs : une cellule fois plus grande qu'une bactérie a un volume un million de fois plus grand.
- Traduire en image, avec une comparaison familière, pour vérifier que le résultat a du sens.
Exemple. Une mitochondrie mesure environ m, une cellule m : le rapport linéaire est de , le rapport de volume de . Une cellule pourrait donc contenir, en volume, des dizaines de milliers de mitochondries — ce qui est cohérent avec le fait qu'une cellule très active du muscle cardiaque en contient plusieurs milliers, et qu'elles occupent alors une part importante de son volume.
Une photographie porte la mention « grossissement ». Sur le tirage, une cellule mesure mm. Sa taille réelle vaut Si, à la place, l'image porte une barre d'échelle légendée « m » et longue de mm sur le papier, on écrit une simple proportionnalité : mm représentent m, donc mm représentent La barre d'échelle est toujours préférable au grossissement : elle reste juste si l'on agrandit ou réduit l'image, ce qui n'est pas le cas d'un imprimé.
Imaginons une cellule agrandie à la taille d'un terrain de football, soit mètres. À la même échelle, une mitochondrie mesurerait deux mètres — la taille d'une personne ; un virus, vingt-quatre centimètres — un ballon ; une protéine, un centimètre — une bille ; et un atome, un dixième de millimètre — un grain de sable fin. Toutes ces choses coexistent dans le même espace. C'est ce vertige d'échelles qu'il faut avoir en tête chaque fois qu'on regarde un schéma de cellule, où tout est dessiné à la même taille pour la commodité du dessin.
3.4 La cellule : un milieu aqueux limité par une membrane
3.4.1 Le savoir central
La cellule, unité fondamentale du vivant, est un milieu réactionnel aqueux séparé de l'extérieur par la membrane plasmique.
Chaque mot compte. Unité fondamentale : rien de vivant n'est plus petit qu'une cellule. Milieu réactionnel : ce n'est pas un réservoir, c'est le lieu de milliers de réactions chimiques simultanées. Aqueux : l'eau représente environ de la masse d'une cellule, et c'est le solvant sans lequel aucune de ces réactions n'aurait lieu. Séparé de l'extérieur par la membrane plasmique : il faut une frontière, sinon le contenu se disperserait et les réactions cesseraient.
Une cellule est la plus petite unité structurale et fonctionnelle d'un être vivant : un milieu aqueux contenant du matériel génétique et les molécules nécessaires à son fonctionnement, délimité par une membrane plasmique.
La membrane plasmique est la frontière qui sépare le contenu de la cellule du milieu extérieur. Épaisse d'environ nanomètres, elle est constituée d'une double couche de phospholipides dans laquelle sont insérées des protéines. Elle est sélectivement perméable : elle laisse passer certaines substances et pas d'autres.
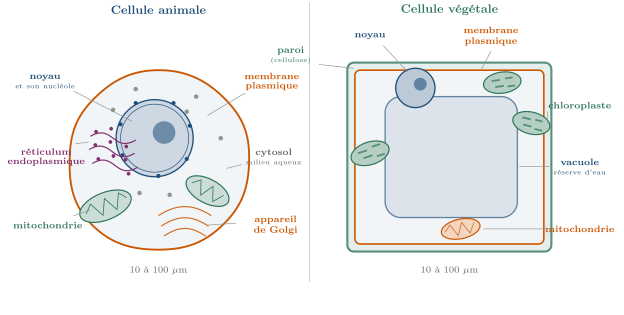
une cellule végétale. Toutes deux possèdent une membrane plasmique, un noyau, un cytosol et des mitochondries ; la cellule végétale possède en plus une paroi rigide, une grande vacuole et des chloroplastes. La paroi n'est pas une membrane : c'est une enveloppe de cellulose, extérieure à la membrane plasmique, et la plasmolyse permettra de le prouver.</div>
Un organite est un compartiment spécialisé de la cellule, généralement délimité par sa propre membrane, et chargé d'une fonction précise : le noyau contient le matériel génétique, la mitochondrie fournit l'énergie, le chloroplaste réalise la photosynthèse, le réticulum endoplasmique et l'appareil de Golgi fabriquent, modifient et distribuent les molécules.
Les cellules qui possèdent un noyau délimité par une enveloppe sont dites eucaryotes : ce sont celles des animaux, des végétaux, des champignons et de nombreux organismes unicellulaires. Celles qui n'en possèdent pas, et dont le matériel génétique baigne librement dans le milieu intérieur, sont dites procaryotes : ce sont les bactéries. Les procaryotes sont généralement dix fois plus petits et beaucoup plus simples ; ils n'en sont pas moins pleinement vivants, et de très loin les plus nombreux sur Terre.
3.4.2 Comment une membrane peut-elle exister ?
Il y a là une petite énigme physique, et elle vaut d'être posée. Comment fabriquer, dans l'eau, une paroi étanche à l'eau, qui se referme sur elle-même et se répare seule ? La réponse tient à la forme d'une molécule.
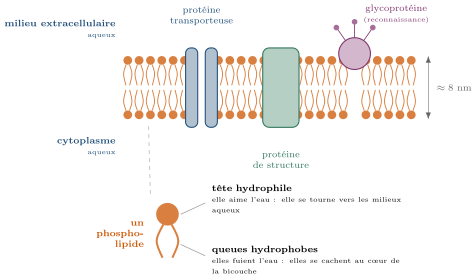
phospholipides tournent leurs têtes hydrophiles vers les deux milieux aqueux et cachent leurs queues hydrophobes au centre : la bicouche se forme spontanément. Des protéines y sont insérées, mobiles comme des glaçons dans une flaque, et assurent le transport, la structure et la reconnaissance. L'épaisseur totale, environ huit nanomètres, est celle de deux molécules mises bout à bout.</div>
Une molécule est dite amphiphile lorsqu'elle possède une partie hydrophile, qui se lie volontiers à l'eau, et une partie hydrophobe, qui la fuit. Les phospholipides de la membrane sont amphiphiles : une tête hydrophile et deux longues queues hydrophobes.
Plongés dans l'eau, ces phospholipides s'organisent tout seuls : les têtes vers l'eau, les queues à l'abri, tournées les unes contre les autres. Il se forme ainsi une double couche, sans qu'aucune information extérieure ne soit nécessaire. Personne ne construit la membrane : elle s'assemble. Et si l'on y fait un trou, il se referme, pour la même raison qui l'avait fait naître.
Les phospholipides ne sont pas soudés entre eux ; ils glissent latéralement, et les protéines avec eux. Cette fluidité explique qu'une cellule puisse changer de forme, se déplacer, fusionner avec une vésicule, ou se diviser en deux sans que sa frontière ne se déchire. Une membrane rigide rendrait tout cela impossible. C'est pourquoi le modèle admis depuis s'appelle la mosaïque fluide : mosaïque pour la diversité des protéines insérées, fluide pour leur mobilité.
3.5 Une cellule qui échange en permanence
3.5.1 Pourquoi il faut échanger
Le fonctionnement cellulaire nécessite un apport en énergie ; la cellule est donc en interaction permanente avec son environnement avec lequel elle réalise de nombreux échanges.
Une cellule fabrique des molécules, transporte des substances contre leur tendance naturelle, se déplace, se divise. Toutes ces opérations coûtent de l'énergie, et cette énergie ne peut venir que de l'extérieur : d'aliments dégradés, ou de la lumière pour les cellules chlorophylliennes. Une cellule isolée de son milieu est une cellule condamnée — c'est d'ailleurs à ce trait qu'on reconnaît le vivant, qui doit constamment consommer pour rester lui-même, là où un cristal peut durer des millions d'années sans rien faire.
La plupart des cellules tirent leur énergie de la dégradation du glucose en présence de dioxygène, dans les mitochondries : L'énergie libérée n'est pas utilisée directement : elle sert à fabriquer une molécule de transfert, l'ATP, que la cellule dépense ensuite au fur et à mesure de ses besoins, comme une monnaie. Cette réaction exige d'importer du glucose et du dioxygène, et d'exporter du dioxyde de carbone : trois échanges permanents, pour une seule fonction.
3.5.2 Quatre manières de traverser une membrane
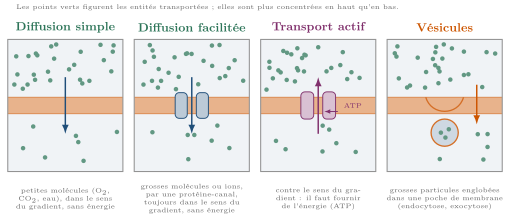
Les trois premières concernent des molécules ou des ions ; la quatrième, des particules trop grosses pour passer, que la cellule enveloppe dans une poche de membrane. Seul le transport actif coûte de l'énergie, parce que seul il remonte le gradient de concentration.</div>
La diffusion est le déplacement spontané d'une substance des régions où elle est la plus concentrée vers celles où elle l'est le moins. On dit qu'elle se fait dans le sens du gradient de concentration. Elle ne demande aucune énergie : elle résulte simplement de l'agitation désordonnée des molécules.
L'osmose est la diffusion de l'eau à travers une membrane sélectivement perméable, du milieu le moins concentré en solutés vers le milieu le plus concentré. Un milieu moins concentré que la cellule est dit hypotonique, plus concentré hypertonique, de même concentration isotonique.
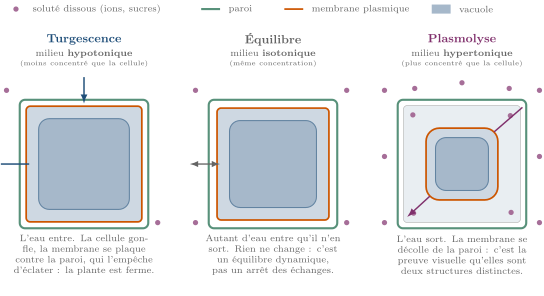
hypertonique, l'eau sort et la membrane plasmique se décolle de la paroi : c'est la plasmolyse. L'expérience est décisive à double titre — elle met en évidence un échange d'eau, et elle prouve que la membrane et la paroi sont deux structures distinctes, ce qu'aucune observation directe ne montrait.</div>
Méthode : Mettre en évidence des échanges à travers la membrane plasmique
Cinq expériences, faciles à conduire, et le raisonnement qui les accompagne.
- Plasmolyse et déplasmolyse. Observer un épiderme d'oignon rouge au microscope, dans l'eau, puis ajouter une solution salée concentrée : le contenu cellulaire se rétracte et la membrane se décolle de la paroi. Rincer à l'eau : la cellule reprend sa forme. Conclusion : de l'eau est sortie puis rentrée, donc la membrane la laisse passer — et elle est distincte de la paroi.
- Turgescence d'un végétal. Une salade fanée redevient ferme dans l'eau froide ; des rondelles de concombre salées rendent leur eau. Le même phénomène, observé à l'œil nu et dans la cuisine.
- Le boudin de dialyse. Une membrane artificielle sélectivement perméable, remplie d'un mélange d'amidon et de glucose, est plongée dans de l'eau. Après une heure, on teste l'eau du bain : le glucose y est passé (test à la liqueur de Fehling positif), l'amidon non (test à l'eau iodée négatif). Conclusion : la perméabilité dépend de la taille de la molécule. Ce montage isole le phénomène physique, sans cellule vivante.
- Un colorant vital. Le rouge neutre, ajouté au milieu, traverse la membrane et s'accumule dans la vacuole des cellules végétales, qui se colore. On visualise ainsi une entrée, et une accumulation qui n'aurait pas lieu si la membrane était un simple filtre.
- Mesurer plutôt que regarder. Placer des fragments de betterave dans des bains d'alcool à différentes concentrations : le pigment rouge fuit d'autant plus que la membrane a été abîmée. En mesurant la coloration du bain, on quantifie l'atteinte de la membrane.
La règle d'interprétation, dans tous les cas : comparer avec un témoin identique en tout point sauf le facteur étudié. Sans témoin, une observation ne prouve rien.
Placés dans l'eau pure, les deux absorbent de l'eau et gonflent. Mais la cellule végétale est enfermée dans une paroi de cellulose rigide, qui l'empêche de dépasser un certain volume : la pression monte à l'intérieur et l'entrée d'eau s'arrête d'elle-même. C'est la turgescence, et c'est ce qui tient une tige droite. Le globule rouge, lui, n'a pas de paroi : il gonfle jusqu'à éclater. C'est aussi pourquoi les solutions injectées en perfusion sont soigneusement préparées isotoniques au sang.
3.6 Molécules exogènes : ce qui fait vivre et ce qui dérègle
La même membrane qui laisse entrer le glucose laisse entrer l'éthanol. Elle ne distingue pas l'utile du nuisible : elle laisse passer ce qui a la bonne taille et les bonnes propriétés chimiques. Tout ce qui suit découle de cette neutralité.
Une molécule est dite exogène lorsqu'elle provient de l'extérieur de l'organisme, par opposition aux molécules endogènes que celui-ci fabrique. Nutriments, dioxygène, vitamines, médicaments, polluants, drogues sont tous exogènes.
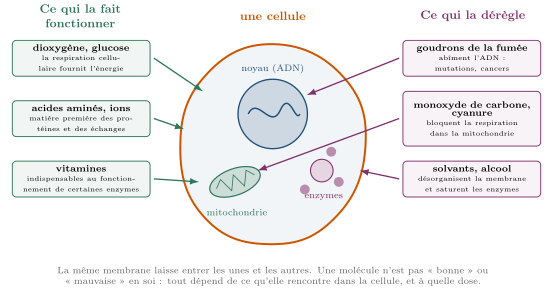
cellule. À gauche, celles dont le fonctionnement cellulaire dépend ; à droite, quelques-unes qui le perturbent, chacune en s'attaquant à une cible précise. Le classement n'est jamais absolu : la même molécule peut être indispensable à faible dose et toxique à forte dose.</div>
Méthode : Relier une molécule exogène au fonctionnement ou au
dysfonctionnement de la cellule</h4><div class="text-gray-700 leading-relaxed font-sans text-xs select-text"> Pour analyser un cas — un médicament, un toxique, un polluant — se poser quatre questions, toujours les mêmes.
- Par où entre-t-elle ? Une petite molécule peu polaire (dioxygène, éthanol, gaz anesthésiants) traverse directement la bicouche ; un ion ou un sucre a besoin d'une protéine de transport ; une grosse particule entre par vésicule.
- Que rencontre-t-elle ? La cible est presque toujours une molécule précise : une enzyme, un récepteur, l'ADN, un constituant de la membrane.
- Quel est l'effet sur la fonction ? Bloquer une enzyme de la respiration prive la cellule d'énergie ; abîmer l'ADN provoque des mutations ; désorganiser la membrane fait perdre son étanchéité.
- À quelle dose, et pendant combien de temps ? C'est le paramètre décisif, et le plus souvent oublié. Le dioxygène lui-même est toxique à forte pression ; le sélénium est indispensable à l'état de traces et toxique au-delà.
- Le monoxyde de carbone (), inodore, produit par une combustion incomplète. Il se fixe sur l'hémoglobine du sang à la place du dioxygène, avec une affinité bien supérieure, et bloque en outre une enzyme de la chaîne respiratoire dans la mitochondrie. Les cellules ne reçoivent plus d'oxygène et ne peuvent plus l'utiliser : les organes les plus consommateurs, cerveau et cœur, cèdent les premiers. C'est la première cause d'intoxication mortelle accidentelle par gaz en France, et elle est entièrement évitable : appareils entretenus, conduits ramonés, aération.
- L'éthanol de toutes les boissons alcoolisées. Petite molécule, il traverse librement les membranes et diffuse dans tout l'organisme. Le foie le transforme en éthanal, une molécule bien plus réactive, qui abîme les protéines et l'ADN. Le Centre international de recherche sur le cancer classe les boissons alcoolisées parmi les cancérogènes certains pour l'être humain.
- Le protoxyde d'azote (), utilisé en médecine comme antalgique et détourné comme gaz euphorisant. Il inactive la vitamine , indispensable à plusieurs enzymes du système nerveux. Un usage répété provoque des atteintes neurologiques parfois irréversibles. En France, une loi du juin en interdit la vente aux mineurs.
Un antibiotique agit sur une structure propre à la cellule bactérienne : sa paroi, ou son ribosome, différents des nôtres. C'est ce qui le rend efficace contre la bactérie et inoffensif pour nos cellules. Un virus ne possède ni paroi ni ribosome : il n'offre aucune de ces cibles. Prescrire un antibiotique contre une infection virale est donc inutile — et nuisible, car cela sélectionne des bactéries résistantes. Cette conclusion, qui paraît technique, découle directement de la question qui va suivre : de quoi un virus est-il fait ?
3.7 Vivants ou non vivants ? Le cas des virus
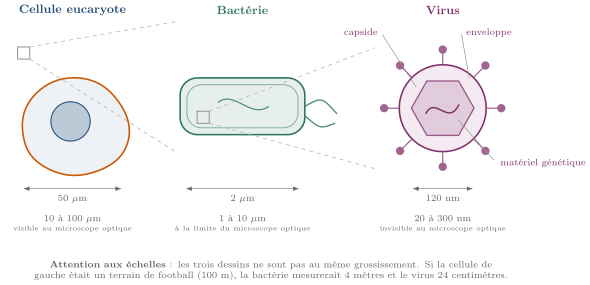
grossissement — l'écart réel est d'un facteur mille entre chacun. Le virus se réduit à un matériel génétique, une coque de protéines appelée capside, et parfois une enveloppe empruntée à la membrane de la cellule qu'il a quittée. Aucun organite, aucun ribosome, aucune membrane à lui : rien pour fabriquer quoi que ce soit.</div>
Un virus est une particule infectieuse constituée d'un matériel génétique enfermé dans une coque de protéines, la capside, parfois entourée d'une enveloppe lipidique. Il ne possède ni membrane plasmique propre, ni organite, ni machinerie de fabrication : il ne peut se multiplier qu'à l'intérieur d'une cellule hôte, dont il détourne les moyens.
Méthode : Discuter du statut des virus : vivants ou non vivants ?
La question ne se tranche pas par un vote mais par la confrontation à des critères explicites. Poser d'abord les critères ; les appliquer ensuite.
| Critère du vivant | Cellule | Virus |
|---|---|---|
| Structure cellulaire (membrane, cytoplasme) | oui | non |
| Métabolisme propre, consommation d'énergie | oui | non |
| Reproduction autonome | oui | non |
| Matériel génétique | oui | oui |
| Hérédité, mutations, évolution | oui | oui |
| Sensible à un environnement, sélectionné par lui | oui | oui |
- Les arguments pour « non vivant ». Un virus n'a pas de cellule ; hors de son hôte, il ne consomme rien, ne fabrique rien, ne transforme rien : c'est un objet chimique inerte. On a d'ailleurs pu cristalliser un virus, ce que l'on ne fera jamais d'une bactérie.
- Les arguments pour « vivant ». Un virus possède un matériel génétique, il se réplique, il mute, il évolue sous la pression de la sélection naturelle — c'est bien pourquoi il faut refaire chaque année le vaccin contre la grippe. Or l'évolution est le critère le plus profond du vivant.
- Prendre du recul sur la question elle-même. Le désaccord ne porte pas sur les faits, qui sont connus de tous, mais sur la définition du vivant. C'est un débat de frontière, comme il en existe dans toutes les sciences ; il rappelle que nos catégories sont des outils, et que la nature n'est pas tenue de s'y ranger.
- Conclure honnêtement. La position majoritaire aujourd'hui est de dire qu'un virus n'est pas un être vivant, mais qu'il fait partie du monde vivant : il en dépend entièrement, il en partage l'histoire évolutive, et il la façonne — une part de notre propre patrimoine génétique est d'origine virale.
Ce qu'un correcteur attend : non pas une réponse tranchée, mais des critères posés, appliqués, et une conclusion argumentée qui reconnaît la part de convention.
En , une équipe française a identifié comme virus un objet observé onze ans plus tôt dans une tour de refroidissement, et pris pour une bactérie tant il était gros. Ce mimivirus atteint plusieurs centaines de nanomètres et possède un génome de plus d'un million de paires de bases, plus grand que celui de certaines bactéries. Il ne possède toujours pas de machinerie de fabrication, donc il reste un virus au sens des critères du tableau. Mais l'écart de taille et de complexité qu'on croyait décisif s'est effondré. Une bonne frontière, en sciences, est une frontière qui accepte d'être déplacée.
3.8 Histoire des sciences : comment a-t-on su ?
3.8.1 La construction de la notion de membrane plasmique
Voici l'un des plus beaux exemples d'une idée construite par étapes, chacune corrigeant la précédente sans la jeter.
Fin du XIXe siècle — une frontière déduite, non vue. Personne n'a jamais vu de membrane : elle est cent fois trop fine pour le microscope optique. Mais on constate que certaines substances entrent dans la cellule et d'autres non, et que celles qui entrent le plus facilement sont les plus solubles dans les graisses. On en déduit — c'est un raisonnement indirect — qu'il doit exister une barrière de nature lipidique.
— Gorter et Grendel comptent. Deux chercheurs néerlandais extraient les lipides des membranes de globules rouges et les étalent en une couche d'une seule molécule d'épaisseur à la surface de l'eau. Ils mesurent l'aire obtenue et la comparent à l'aire totale des globules : ils trouvent environ le double. Conclusion : la membrane est faite de deux couches de lipides. C'est le premier modèle correct, et il repose sur une simple mesure de surface. L'histoire ajoute une leçon savoureuse : leur protocole comportait deux erreurs — ils sous-estimaient à la fois la quantité de lipides extraits et l'aire des globules — qui se compensaient presque exactement. Une conclusion juste peut donc sortir d'une expérience imparfaite ; c'est la reproduction par d'autres, avec de meilleures méthodes, qui l'a rendue solide.
— Danielli et Davson ajoutent les protéines. La tension superficielle mesurée aux membranes réelles est plus faible que celle d'une simple bicouche lipidique. Les deux chercheurs en concluent que des protéines recouvrent les deux faces, comme le pain d'un sandwich. Le modèle est faux dans son détail, mais il introduit l'ingrédient qui manquait.
— Robertson la photographie. Le microscope électronique montre enfin la membrane : trois lignes, deux sombres et une claire au milieu, d'environ huit nanomètres d'épaisseur au total. L'image confirme la bicouche — et, comme souvent, elle confirme un modèle établi bien avant qu'on ne puisse le voir.
— Frye et Edidin montrent qu'elle bouge. Ils fusionnent une cellule humaine et une cellule de souris, après avoir marqué les protéines de chacune par un colorant fluorescent différent. Au début, la cellule fusionnée est mi-verte mi-rouge ; moins d'une heure plus tard, les deux couleurs sont complètement mélangées. Les protéines ont donc diffusé dans la membrane : celle-ci est fluide.
— Singer et Nicolson synthétisent. Le modèle de la mosaïque fluide rassemble tout : une bicouche de phospholipides, fluide, dans laquelle des protéines flottent et traversent. Il est toujours enseigné aujourd'hui, enrichi mais non renversé.
Aucune de ces étapes n'est « la fausse » et aucune n'est « la vraie ». Chacune rendait compte des faits connus de son temps et se trouvait mise en défaut par une mesure nouvelle. Ce n'est pas une faiblesse de la science : c'est son mode de fonctionnement. Un modèle est un outil que l'on garde tant qu'il travaille, que l'on répare quand il grince, et que l'on remplace quand il casse.
3.8.2 La découverte des virus : trouver ce qu'on ne peut pas voir
— Ivanovski constate l'impossible. Le botaniste russe Dmitri Ivanovski étudie une maladie du tabac. Il filtre la sève d'une plante malade à travers un filtre de porcelaine assez fin pour retenir toutes les bactéries connues. Le filtrat, pourtant, reste contagieux. Ivanovski suppose une erreur ou une toxine.
— Beijerinck ose l'interprétation. Le Néerlandais Martinus Beijerinck refait l'expérience et va plus loin : l'agent se multiplie dans la plante, donc ce n'est pas un poison ; il traverse les filtres, donc il n'est pas une bactérie. Il le nomme contagium vivum fluidum, et emploie le mot virus. Le raisonnement est remarquable : il caractérise entièrement un objet qu'il n'a jamais vu, par ce qu'il fait et par ce qu'il traverse.
— Stanley le cristallise. L'Américain Wendell Stanley obtient le virus de la mosaïque du tabac sous forme de cristaux — et ces cristaux, remis en solution, sont toujours infectieux. L'effet est sidérant : un agent de maladie qui se range comme du sel. Le résultat nourrira pendant des décennies le débat sur la nature du vivant. Prix Nobel de chimie en .
— On le voit enfin. Le microscope électronique livre la première image du virus de la mosaïque du tabac : un bâtonnet d'environ nanomètres de long. Quarante-sept ans se sont écoulés depuis le filtre d'Ivanovski.
Retenez la chronologie : on a caractérisé les virus, on a compris comment ils se comportaient, on les a même cristallisés — tout cela avant d'en avoir jamais vu un seul. C'est exactement ce qui s'était passé pour la maille cristalline au chapitre précédent, imaginée en et vue en . Le savoir scientifique ne consiste pas à regarder : il consiste à raisonner sur des effets mesurables.
3.9 Bilan
Ce qu'il faut savoir
- La découverte de l'unité cellulaire est liée à l'invention du microscope ; l'observation de structures semblables dans de très nombreux organismes a conduit au concept général de cellule et à la théorie cellulaire.
- L'invention du microscope électronique a permis d'explorer l'intérieur de la cellule et de relier l'échelle moléculaire à l'échelle cellulaire.
- La cellule, unité fondamentale du vivant, est un milieu réactionnel aqueux séparé de l'extérieur par la membrane plasmique.
- Le fonctionnement cellulaire nécessite un apport en énergie ; la cellule est donc en interaction permanente avec son environnement, avec lequel elle réalise de nombreux échanges.
Ce qu'il faut savoir faire
- Analyser et interpréter des documents historiques relatifs à la théorie cellulaire, en distinguant l'observation de son interprétation.
- Situer les ordres de grandeur : atome, molécule, organite, cellule, organisme — et exploiter une barre d'échelle ou un grossissement.
- Relier l'échelle de la cellule, de ses organites et des molécules qui la constituent, en n'oubliant pas d'élever au cube pour les volumes.
- Mettre en évidence des échanges à travers la membrane plasmique, avec un témoin.
- Discuter du statut des virus en posant explicitement les critères retenus.
- Relier la présence de molécules exogènes au bon fonctionnement cellulaire comme à ses dysfonctionnements, en raisonnant : entrée, cible, effet, dose.
Trois chiffres à retenir
nanomètres est l'épaisseur de la membrane plasmique. de la masse d'une cellule est de l'eau. micromètre est la limite de résolution du microscope optique — et c'est elle qui a maintenu les virus invisibles pendant un demi-siècle.
Ce que ce chapitre dit de la science elle-même
Trois leçons se recoupent ici, et méritent d'être tenues ensemble.
La première est que l'instrument précède souvent l'idée. Sans le microscope de Hooke, pas de mot « cellule » ; sans celui de Leeuwenhoek, pas de micro-organismes ; sans le microscope électronique, pas d'organites ni de membrane. On aime raconter que les sciences avancent par des idées géniales ; elles avancent au moins autant par des lentilles mieux polies.
La deuxième est que voir n'est pas nécessaire pour savoir. Beijerinck a caractérisé les virus quarante-sept ans avant qu'on ne les voie, en raisonnant sur ce qui traversait un filtre. Gorter et Grendel ont établi la bicouche lipidique en , trente-quatre ans avant la première image, en mesurant une surface. Une trace mesurable suffit, pourvu qu'on sache ce qu'elle implique.
La troisième est que les frontières se déplacent. Vivant ou non vivant : la question des virus n'a pas de réponse dans la nature, elle en a une dans nos définitions — et ces définitions sont des outils, à revoir quand un mimivirus vient les gêner. Savoir dire « cela dépend du critère qu'on retient, et voici pourquoi » n'est pas une dérobade. C'est, très exactement, penser en scientifique.