Les mécanismes de l'évolution
Cours complet · SVT (terminale), chapitre 3 · terminale, spécialité sciences de la vie et de la Terre
Travailler ce chapitre sur Adloun Exercices corrigés de ce chapitre
L'évolution biologique désigne la transformation, au cours des générations, des caractéristiques héréditaires des populations d'êtres vivants. Si Charles Darwin en a posé les fondements en 1859 en proposant la sélection naturelle, la théorie synthétique de l'évolution (ou néodarwinisme) a réuni, à partir des années 1930, l'apport de Darwin et celui de la génétique des populations. Comprendre l'évolution, c'est désormais comprendre comment varient, d'une génération à l'autre, les fréquences des allèles au sein d'une population.
Ce chapitre présente l'unité d'étude de l'évolution, la population, et son pool génétique. Il introduit le modèle de référence de Hardy-Weinberg, qui décrit une population théorique n'évoluant pas, puis les écarts à ce modèle. Ces écarts révèlent l'action des forces évolutives : sélection naturelle, dérive génétique, mutations et migrations. Nous verrons enfin comment ces forces peuvent conduire à l'apparition de nouvelles espèces (spéciation), quel rôle joue la sélection sexuelle, et pourquoi l'évolution constitue une véritable grille de lecture du monde vivant.
3.1 Population et pool génétique
3.1.1 La population, unité d'évolution
Un individu, au cours de sa vie, ne change pas de patrimoine génétique : il ne peut donc pas « évoluer » au sens biologique. L'évolution s'observe à l'échelle de la population et se mesure d'une génération à la suivante.
Une population est un ensemble d'individus de la même espèce, vivant dans un même territoire à un moment donné, et susceptibles de se reproduire entre eux (interféconds). Les croisements y sont, en première approximation, plus fréquents qu'avec les individus d'autres populations.
Le pool génétique (ou patrimoine génétique d'une population) est l'ensemble de tous les allèles présents, à l'ensemble des gènes, chez tous les individus de la population à un instant donné. C'est ce pool, et non chaque individu pris isolément, qui se transmet et se modifie au cours du temps.
3.1.2 Fréquences alléliques et génotypiques
La fréquence d'un allèle est la proportion de cet allèle parmi tous les allèles du même gène présents dans la population. Pour un gène diploïde possédant deux allèles et , en notant et leurs effectifs et l'effectif total de la population :
Le facteur traduit le fait que chaque individu diploïde porte deux allèles du gène.
Méthode : Calculer une fréquence allélique à partir des génotypes
On dispose souvent des effectifs des trois génotypes , et . Chaque individu apporte deux allèles ; chaque apporte un et un ; chaque apporte deux allèles . D'où :
On peut aussi passer par les fréquences génotypiques (qui somment à 1) :
Dans une population de individus, on dénombre individus , individus et individus . Le nombre total d'allèles vaut . On obtient :
3.2 Le modèle de Hardy-Weinberg
3.2.1 Un modèle de population qui n'évolue pas
En 1908, le mathématicien G. H. Hardy et le médecin W. Weinberg ont montré, indépendamment, que dans une population idéale les fréquences alléliques restent constantes de génération en génération, et que les fréquences génotypiques se déduisent simplement des fréquences alléliques. Ce modèle sert de référence : une population réelle qui s'en écarte est en train d'évoluer.
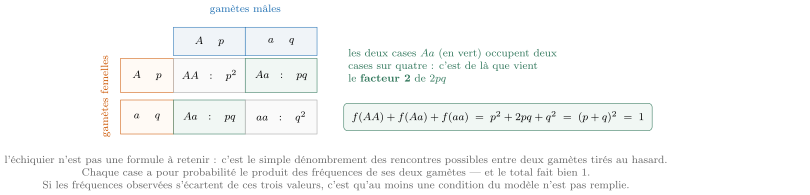
Soit un gène à deux allèles de fréquences et , avec . Dans une population idéale, les fréquences génotypiques à la génération suivante sont données par le développement de :
De plus, ces fréquences alléliques et génotypiques restent stables au fil des générations : la population est dite à l'équilibre de Hardy-Weinberg. Une telle population n'évolue pas.
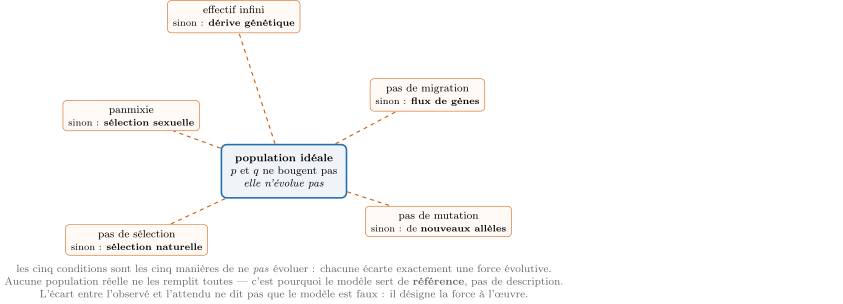
L'équilibre de Hardy-Weinberg n'est atteint que si les cinq conditions suivantes sont réunies simultanément :
- effectif infini (très grand) : pas de dérive génétique ;
- panmixie : croisements aléatoires, sans choix du partenaire (pas de sélection sexuelle, pas de consanguinité préférentielle) ;
- absence de sélection naturelle : tous les génotypes ont la même valeur sélective (même survie, même fécondité) ;
- absence de mutation : pas de création de nouveaux allèles ;
- absence de migration : population fermée, sans flux de gènes entrants ou sortants.
Reprenons et . Si la population est à l'équilibre, on attend les fréquences génotypiques :
soit, pour individus, des effectifs attendus de , et : la population de l'exemple précédent est exactement à l'équilibre théorique.
3.2.2 Intérêt et écarts à l'équilibre
Méthode : Tester si une population est à l'équilibre
- Calculer les fréquences alléliques et à partir des effectifs génotypiques observés.
- En déduire les effectifs attendus sous Hardy-Weinberg : , et .
- Comparer observés et attendus (graphiquement, ou par un test du en mathématiques). Un écart important signale qu'au moins une condition n'est pas respectée : la population évolue.
Un écart durable à l'équilibre de Hardy-Weinberg révèle l'action d'une ou plusieurs forces évolutives. Par exemple :
- un déficit en hétérozygotes peut traduire de la consanguinité ou une sélection contre ;
- une diminution régulière de au fil des générations traduit une sélection défavorable à l'allèle ;
- des variations erratiques de petites populations traduisent la dérive.
Le modèle est donc un outil de détection : il ne décrit pas la réalité, il fournit le « zéro évolution » auquel on compare les données.
3.3 Les forces évolutives
Quatre forces principales modifient les fréquences alléliques d'une population et la font donc évoluer. Trois sont orientées (mutation, migration, sélection), la quatrième est aléatoire (la dérive génétique).
3.3.1 Les mutations : source de la diversité
Une mutation est une modification aléatoire et héréditaire de la séquence de l'ADN. Lorsqu'elle touche les cellules germinales, elle est transmise à la descendance et fait apparaître de nouveaux allèles. La mutation est la seule source de nouveauté génétique : sans elle, aucune autre force ne disposerait de variation à faire jouer.
Prises individuellement, les mutations sont rares (de l'ordre de à par gène et par génération) et modifient peu, à elles seules, les fréquences alléliques. Leur rôle majeur est de créer la diversité sur laquelle agissent ensuite la sélection et la dérive.
3.3.2 La sélection naturelle
La sélection naturelle est le processus par lequel les individus porteurs des allèles les plus favorables dans un environnement donné survivent et se reproduisent davantage (meilleure valeur sélective, ou fitness). Ces allèles voient leur fréquence augmenter de génération en génération, tandis que les allèles défavorables régressent. La sélection est une force orientée et adaptative.
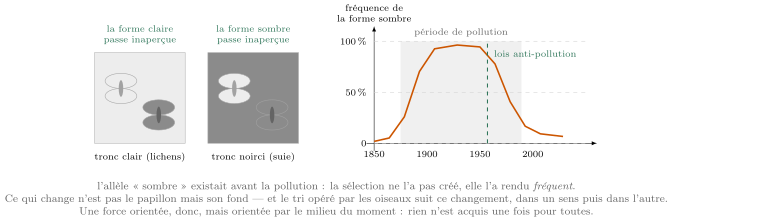
Avant l'ère industrielle, la forme claire de ce papillon, camouflée sur les troncs couverts de lichens clairs, dominait. Avec la pollution noircissant les troncs au XIXe siècle dans les régions industrielles anglaises, la forme sombre (mélanique), mieux camouflée vis-à-vis des oiseaux prédateurs, est devenue majoritaire : la fréquence de l'allèle « sombre » a fortement augmenté. La dépollution a ensuite inversé la tendance. C'est un exemple direct de sélection naturelle sur un caractère héréditaire.
3.3.3 La dérive génétique
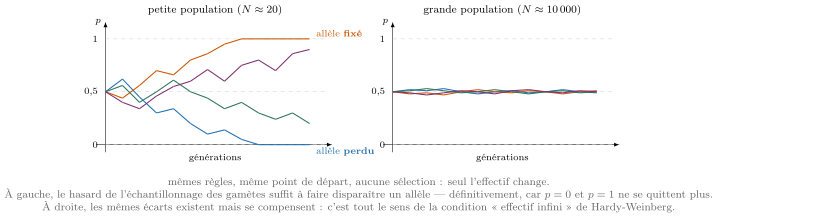
La dérive génétique est la modification aléatoire des fréquences alléliques d'une génération à l'autre, due au hasard de l'échantillonnage des gamètes qui forment la génération suivante. Contrairement à la sélection, elle n'est pas orientée et ne dépend pas de la valeur adaptative des allèles.
L'intensité de la dérive dépend de l'effectif de la population :
- dans une petite population, la dérive est forte : les fréquences alléliques fluctuent fortement et un allèle peut être fixé () ou perdu () rapidement, même s'il est neutre ;
- dans une grande population, la dérive est faible : les fréquences restent proches de leurs valeurs initiales, conformément à la condition « effectif infini » de Hardy-Weinberg.
La dérive entraîne une perte de diversité génétique et, à long terme, la divergence de populations séparées.
Lorsqu'un petit groupe d'individus colonise un nouveau milieu (effet de fondation), ou lorsqu'une catastrophe réduit brutalement un effectif (goulot d'étranglement), le pool génétique des survivants n'est qu'un échantillon non représentatif du pool d'origine. Certaines maladies génétiques rares sont ainsi anormalement fréquentes dans des populations humaines isolées, descendant d'un petit nombre de fondateurs.
3.3.4 Les migrations (flux de gènes)
La migration, ou flux de gènes, correspond au déplacement d'individus (ou de gamètes, comme le pollen) entre populations, accompagné de la reproduction. Elle introduit ou exporte des allèles et tend à homogénéiser les pools génétiques des populations concernées, réduisant leurs différences. À l'inverse, l'absence de migration favorise leur divergence.
3.4 La spéciation
3.4.1 Notion d'espèce et d'isolement reproducteur
Selon le concept biologique de l'espèce, une espèce est un ensemble de populations dont les individus sont interféconds et engendrent une descendance elle-même fertile, et qui sont isolés sur le plan reproducteur des individus d'autres espèces.
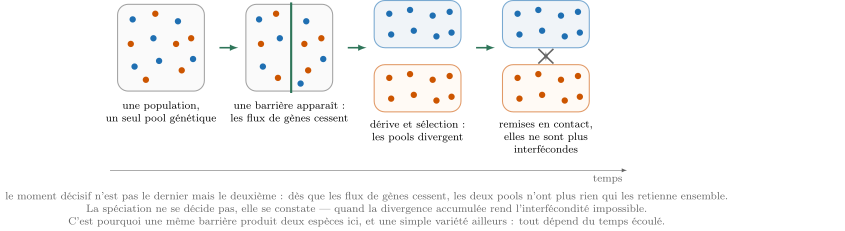
La spéciation est l'apparition d'une nouvelle espèce. Elle survient lorsqu'un isolement reproducteur s'installe entre des populations, c'est-à-dire lorsque les flux de gènes entre elles sont interrompus. Cet isolement peut être :
- géographique (barrière physique : montagne, mer, rivière) ;
- écologique, temporel ou comportemental (milieux, périodes ou rituels de reproduction différents) ;
- génétique (incompatibilité empêchant la fécondation ou rendant les hybrides stériles).
Une fois les flux de gènes interrompus, les pools génétiques des populations séparées divergent indépendamment sous l'action de la dérive génétique et de la sélection naturelle (les milieux exerçant souvent des pressions différentes). Lorsque la divergence est telle que les individus, remis en contact, ne sont plus interféconds, deux espèces distinctes sont apparues. La spéciation est donc le résultat cumulé des forces évolutives sur des populations isolées.
À partir d'une espèce ancestrale ayant colonisé l'archipel, l'isolement géographique entre îles, puis l'adaptation à des ressources alimentaires différentes (graines dures, insectes, nectar), ont conduit à la divergence des becs et à l'apparition de plusieurs espèces de pinsons. C'est un exemple de radiation adaptative étudié par Darwin.
3.5 La sélection sexuelle
La sélection sexuelle est une forme particulière de sélection liée non pas à la survie, mais au succès reproducteur. Elle résulte soit de la compétition entre individus de même sexe (souvent les mâles) pour l'accès aux partenaires, soit du choix du partenaire par l'autre sexe (souvent les femelles). Les allèles favorisant l'accès à la reproduction se répandent, même s'ils sont parfois défavorables à la survie.
La longue queue colorée du paon mâle le rend plus visible des prédateurs et plus lourd : elle est désavantageuse pour la survie. Mais les femelles choisissent préférentiellement les mâles aux queues les plus développées (signal de bonne qualité génétique). L'allèle responsable se transmet donc largement : c'est la sélection sexuelle, et non la sélection naturelle au sens strict, qui explique ce caractère. La sélection sexuelle viole la condition de panmixie du modèle de Hardy-Weinberg.
3.6 L'évolution comme grille de lecture du vivant
L'évolution fournit un cadre explicatif cohérent à l'ensemble de la biologie. Elle rend compte :
- de l'unité du vivant : code génétique universel, parenté moléculaire des espèces (ancêtres communs) ;
- de la diversité du vivant : la biodiversité actuelle résulte de l'accumulation, dans le temps, de transformations des populations ;
- des adaptations des organismes à leur milieu, sans recourir à une finalité : elles résultent de la sélection sur des variations aléatoires ;
- de structures imparfaites ou vestigiales (organes réduits, gènes non fonctionnels), héritées d'ancêtres et non recréées de zéro.
Selon la formule de Th. Dobzhansky : « Rien en biologie n'a de sens, sinon à la lumière de l'évolution. »