L'histoire humaine lue dans son génome
Cours complet · SVT (terminale), chapitre 4 · terminale, spécialité sciences de la vie et de la Terre
Travailler ce chapitre sur Adloun Exercices corrigés de ce chapitre
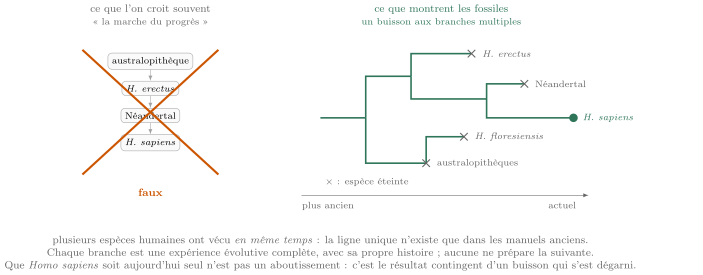
L'espèce humaine, Homo sapiens, est le produit d'une longue histoire évolutive partagée avec l'ensemble du monde vivant. Comprendre cette histoire, c'est d'abord situer l'Homme parmi les Primates, identifier ses plus proches parents actuels et fossiles, puis reconstruire les relations de parenté qui structurent la lignée humaine. Loin d'une marche linéaire et progressive d'un ancêtre simiesque vers l'Homme moderne, l'histoire de la lignée humaine se présente comme un buisson touffu, riche en espèces apparues, ayant coexisté puis disparu.
Les progrès du séquençage de l'ADN, y compris l'ADN fossile (paléogénomique), ont profondément renouvelé notre regard. Le génome de chaque individu conserve aujourd'hui la trace écrite des migrations passées, de la diversification des populations et même de rencontres anciennes avec d'autres espèces humaines comme l'Homme de Néandertal et l'Homme de Denisova. Ce chapitre montre comment la comparaison des caractères anatomiques et l'analyse des génomes permettent, ensemble, de lire l'histoire humaine.
4.1 La place de l'Homme parmi les Primates
4.1.1 L'Homme, un Primate parmi d'autres
L'Homme appartient au groupe des Primates, mammifères caractérisés par plusieurs caractères partagés (caractères homologues) : des mains préhensiles munies d'ongles plats, un pouce opposable, une vision binoculaire avec des orbites tournées vers l'avant permettant la vision du relief, et un développement important du cerveau relativement à la taille du corps.
Un caractère homologue est un caractère partagé par plusieurs espèces parce qu'elles l'ont hérité d'un ancêtre commun. L'homologie se reconnaît à l'identité du plan d'organisation (mêmes pièces, mêmes connexions), indépendamment de la fonction. Par exemple, le membre antérieur de l'Homme, du chimpanzé et du gorille est bâti sur le même plan (un stylopode, un zeugopode à deux os, un autopode).
Pour un caractère donné, on distingue son état ancestral (l'état présent chez l'ancêtre commun) et son état dérivé (l'état nouveau, apparu au cours de l'évolution). Le partage exclusif d'un même état dérivé (innovation évolutive) par plusieurs espèces signe une parenté étroite : c'est la base de la reconstruction phylogénétique.
4.1.2 La parenté étroite entre l'Homme et le chimpanzé
Parmi les Primates, les grands singes (gorille, orang-outan, chimpanzé, bonobo) sont les plus proches de l'Homme. La comparaison des génomes confirme que le chimpanzé (et le bonobo) constituent le groupe le plus étroitement apparenté à l'Homme : l'ADN humain et l'ADN du chimpanzé sont identiques à environ 98--99 % pour les séquences comparables.
Plus deux espèces partagent un grand nombre de gènes et de séquences nucléotidiques semblables, plus elles présentent de caractères dérivés communs, et plus leur ancêtre commun est récent. La forte similitude génétique entre l'Homme et le chimpanzé traduit donc l'existence d'un ancêtre commun récent, qui aurait vécu il y a environ 7 millions d'années.
L'Homme ne descend pas du chimpanzé : ces deux espèces actuelles sont issues d'un même ancêtre commun, aujourd'hui disparu, dont aucune n'est la copie. Depuis cet ancêtre, chaque lignée a évolué de son côté en accumulant ses propres caractères dérivés. Le chimpanzé n'est donc pas un « Homme inachevé » mais une espèce contemporaine ayant sa propre histoire évolutive.
4.2 La lignée humaine et ses caractères dérivés
4.2.1 Définir la lignée humaine
La lignée humaine regroupe l'ensemble des espèces fossiles et actuelles plus étroitement apparentées à l'Homme moderne (Homo sapiens) qu'au chimpanzé. Elle correspond à l'ensemble des descendants de l'ancêtre commun exclusif à l'Homme et au chimpanzé, du côté humain de la divergence. On y trouve notamment les genres Sahelanthropus, Australopithecus, Paranthropus et Homo.
4.2.2 Les grands caractères dérivés de la lignée humaine
Plusieurs caractères dérivés, propres à la lignée humaine, permettent de la distinguer des autres Primates. Ils n'apparaissent pas tous en même temps : leur acquisition est progressive et indépendante (on parle de mosaïque évolutive).
Les principaux caractères dérivés de la lignée humaine sont :
- la bipédie permanente, c'est-à-dire une locomotion debout sur les deux membres postérieurs ;
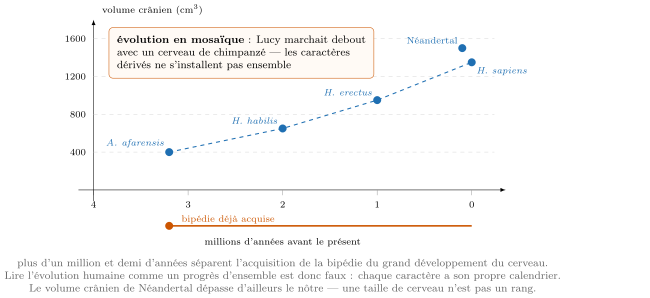
- le développement du volume crânien (encéphalisation), de l'ordre de à chez les australopithèques jusqu'à environ chez Homo sapiens ;
- une face de plus en plus réduite et un front redressé, avec recul de la mâchoire (réduction du prognathisme) ;
- le développement de la culture : fabrication d'outils, maîtrise du feu, pratiques funéraires, art.
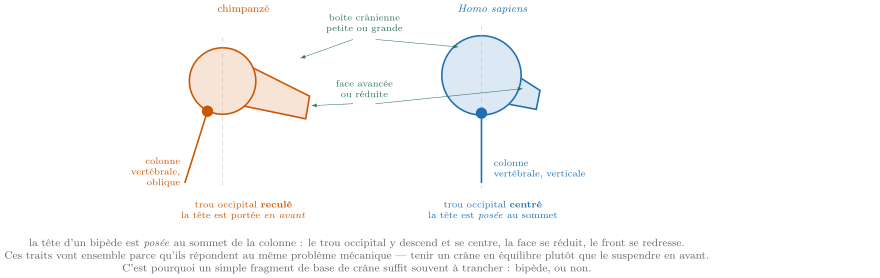
La bipédie se reconnaît à plusieurs caractères squelettiques : le trou occipital (par où passe la moelle épinière) est centré sous le crâne, ce qui place la tête en équilibre au sommet de la colonne ; la colonne vertébrale présente une double courbure en S ; le bassin est court et large ; le fémur est oblique (les genoux se rapprochent de l'axe du corps) ; le gros orteil est aligné avec les autres et le pied possède une voûte plantaire. Chez le chimpanzé, le trou occipital est reculé et le gros orteil est opposable, adaptés à une vie partiellement arboricole.
Australopithecus afarensis (l'individu « Lucy », daté d'environ millions d'années) était déjà bipède mais conservait un faible volume crânien () et des aptitudes au grimper. La bipédie a donc été acquise bien avant le grand développement du cerveau : les caractères dérivés ne s'installent pas simultanément, ce qui illustre l'évolution en mosaïque.
4.3 Reconstruire les relations de parenté
4.3.1 La méthode de la phylogénie
Méthode : Construire un arbre phylogénétique
Pour reconstruire les relations de parenté entre des espèces :
- on choisit un ensemble de caractères comparables (anatomiques, moléculaires) ;
- pour chaque caractère, on détermine l'état ancestral et l'état dérivé (par comparaison avec un groupe extérieur) ;
- on regroupe les espèces qui partagent le plus grand nombre d'états dérivés communs : ce partage indique un ancêtre commun exclusif plus récent ;
- on traduit ces regroupements emboîtés en un arbre où chaque nœud représente un ancêtre commun hypothétique et chaque innovation évolutive est placée sur une branche.
Un arbre phylogénétique est une représentation graphique des relations de parenté entre espèces. Les extrémités (feuilles) correspondent aux espèces étudiées, les nœuds aux ancêtres communs hypothétiques. La proximité dans l'arbre traduit l'ancienneté de l'ancêtre commun : deux espèces partageant un nœud récent sont plus proches parentes que deux espèces ne se rejoignant qu'à un nœud ancien.
Les phylogénies établies à partir des caractères anatomiques et celles établies à partir des données moléculaires (séquences d'ADN ou de protéines) donnent des arbres très largement concordants. Cette convergence indépendante renforce la fiabilité des relations de parenté reconstruites et constitue un argument majeur en faveur de l'évolution.
4.3.2 Lire les apports de la paléogénomique
Le séquençage de l'ADN extrait de fossiles (ADN ancien) permet désormais de comparer directement les génomes d'espèces disparues à celui d'Homo sapiens, et donc de préciser leur position dans le buisson humain.
À partir d'ossements vieux de plusieurs dizaines de milliers d'années, des équipes ont reconstitué le génome de l'Homme de Néandertal (Homo neanderthalensis). La comparaison montre que Néandertal et Homo sapiens sont deux espèces distinctes, mais très proches parentes, issues d'un ancêtre commun ayant vécu il y a environ à ans.
4.4 Diversité génétique et migrations des populations humaines
4.4.1 Une faible diversité, une origine africaine
Comparée à celle des chimpanzés, la diversité génétique de l'espèce humaine est faible : deux individus humains pris au hasard, même sur des continents différents, sont génétiquement très semblables. Cette faible diversité s'explique par l'origine récente et commune de l'espèce et par le faible effectif des populations fondatrices.
La diversité génétique est la plus élevée au sein des populations africaines, et elle diminue à mesure que l'on s'éloigne de l'Afrique. Ce gradient s'explique par le modèle de l'origine africaine récente : Homo sapiens est apparu en Afrique, et seules des fractions des populations ont migré vers les autres continents, emportant à chaque étape une partie seulement de la diversité initiale.
L'ADN mitochondrial se transmet uniquement par la mère, sans recombinaison, et accumule des mutations au cours du temps à un rythme relativement régulier. En comparant les ADN mitochondriaux de populations actuelles, on reconstruit leurs liens de parenté et leurs routes de migration. De même, le chromosome Y, transmis de père en fils, retrace les lignées paternelles.
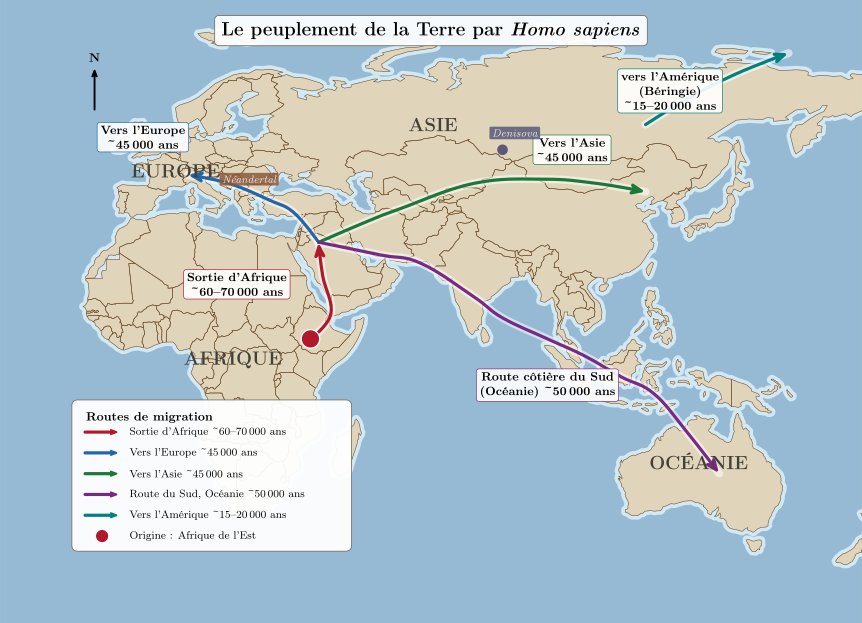
Plus deux populations partagent de variations (allèles) identiques, plus elles sont proches et plus leur séparation est récente. Le suivi de ces marqueurs indique que Homo sapiens a quitté l'Afrique il y a environ à ans, a peuplé le Proche-Orient, puis l'Asie et l'Europe, avant d'atteindre l'Australie puis l'Amérique. Les différences génétiques entre populations actuelles sont faibles et ne définissent aucune « race » biologique.
La carte ci-dessous retrace les grandes routes du peuplement de la planète par Homo sapiens, reconstituées notamment grâce aux marqueurs génétiques (ADN mitochondrial, chromosome Y) : une sortie d'Afrique il y a environ à ans, suivie d'une diffusion vers le Proche-Orient, l'Europe, l'Asie, l'Océanie, puis l'Amérique.
4.5 Métissages avec Néandertal et Denisova
4.5.1 Des rencontres inscrites dans nos génomes
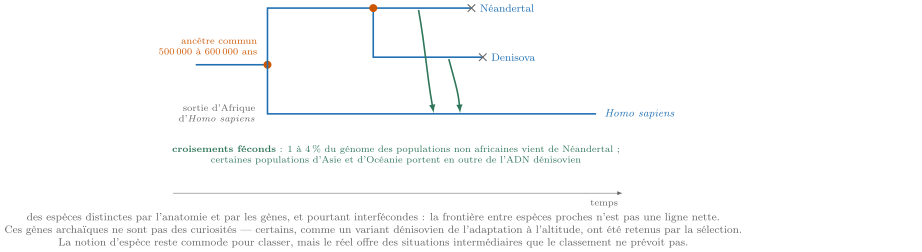
Lorsque Homo sapiens a migré hors d'Afrique, il a rencontré d'autres espèces humaines déjà installées en Eurasie : les Néandertaliens à l'Ouest, les Dénisoviens (connus surtout par leur ADN et quelques fossiles de Sibérie) plus à l'Est. La comparaison des génomes révèle que ces rencontres ont donné lieu à des croisements féconds.
Le génome des populations humaines actuelles non africaines contient une petite fraction (de l'ordre de à ) de séquences héritées de Néandertal. Certaines populations d'Asie et d'Océanie portent en outre des séquences héritées de Denisova. Ces séquences témoignent de métissages anciens entre Homo sapiens et ces espèces aujourd'hui disparues.
Certaines séquences héritées de Néandertal ou de Denisova ont été conservées car avantageuses dans de nouveaux environnements : par exemple, un variant d'origine dénisovienne facilitant l'adaptation à l'altitude est répandu chez les populations tibétaines. D'autres séquences archaïques, au contraire, sont rares dans le génome moderne, ce qui suggère qu'elles ont été contre-sélectionnées.
4.5.2 Conséquences sur la notion d'espèce
Au sens biologique, une espèce regroupe des individus interféconds, c'est-à-dire capables de se reproduire entre eux et d'engendrer une descendance elle-même féconde, et génétiquement isolés des autres groupes. Cette définition rencontre des limites pour les espèces fossiles, que l'on ne peut pas faire se reproduire, et lorsque des groupes distincts échangent malgré tout des gènes.
Néandertal, Denisova et Homo sapiens sont décrits comme des espèces (ou sous-espèces) distinctes en raison de leurs différences anatomiques et génétiques, alors même qu'ils ont pu se croiser et avoir une descendance féconde. Cela montre que la séparation entre espèces proches n'est pas toujours nette : la notion d'espèce est une construction commode pour classer le vivant, mais le réel présente des situations intermédiaires.
4.6 Un buisson, pas une échelle
Le buissonnement désigne le fait que, dans un groupe, de nombreuses espèces apparaissent, coexistent et disparaissent au cours du temps. La lignée humaine n'échappe pas à cette règle : plusieurs espèces du genre Homo (par exemple Homo erectus, Homo neanderthalensis, l'Homme de Denisova, Homo floresiensis) ont vécu en même temps. Homo sapiens est aujourd'hui la seule espèce humaine survivante, mais il n'en a pas toujours été ainsi.
L'évolution humaine n'est pas une suite linéaire conduisant inéluctablement à Homo sapiens. C'est un buisson aux branches multiples, où chaque espèce est une expérience évolutive ayant sa propre histoire. La survie de notre seule espèce est le résultat contingent de cette histoire, et non l'aboutissement programmé d'un progrès.